Neste artigo43 tópicos
- Pequenas sequências de aminoácidos podem controlar meristemas, arquitetura radicular, nutrição, estômatos e respostas ao ambiente, conectando a percepção de um estímulo à reorganização da fisiologia da planta.
- Neste artigo
- Mensagens pequenas, circuitos regulatórios grandes
- Como um peptídeo se transforma em sinal
- O receptor transforma a mensagem química em resposta celular
- Peptídeos e fitormônios: circuitos integrados
- Crescimento e desenvolvimento: onde os peptídeos organizam a planta
- CLE e o controle dos meristemas
- RGF e o meristema radicular
- IDA não “faz a planta crescer”, ela permite que células se separem
- PSK e expansão celular
- EPFs desenham a superfície da folha
- Nutrição e comunicação entre raiz e parte aérea
- CEP e a busca coordenada por nitrogênio
- O sinal de N já começa a aparecer em culturas
- CLE25 transforma déficit hídrico radicular em resposta foliar
- Quando o ambiente muda: peptídeos na resposta ao estresse
- Seca: respostas rápidas e respostas sistêmicas
- Salinidade: parede celular, membrana e estado redox
- Calor: a membrana também participa da interpretação do sinal
- Frio: proteger a reprodução sem penalizar a planta em condição normal
- O que já sabemos em culturas agrícolas
- EPF em cevada
- EPF em trigo e o custo de exagerar no sinal
- CEP em soja
- RGF em tomate e arroz
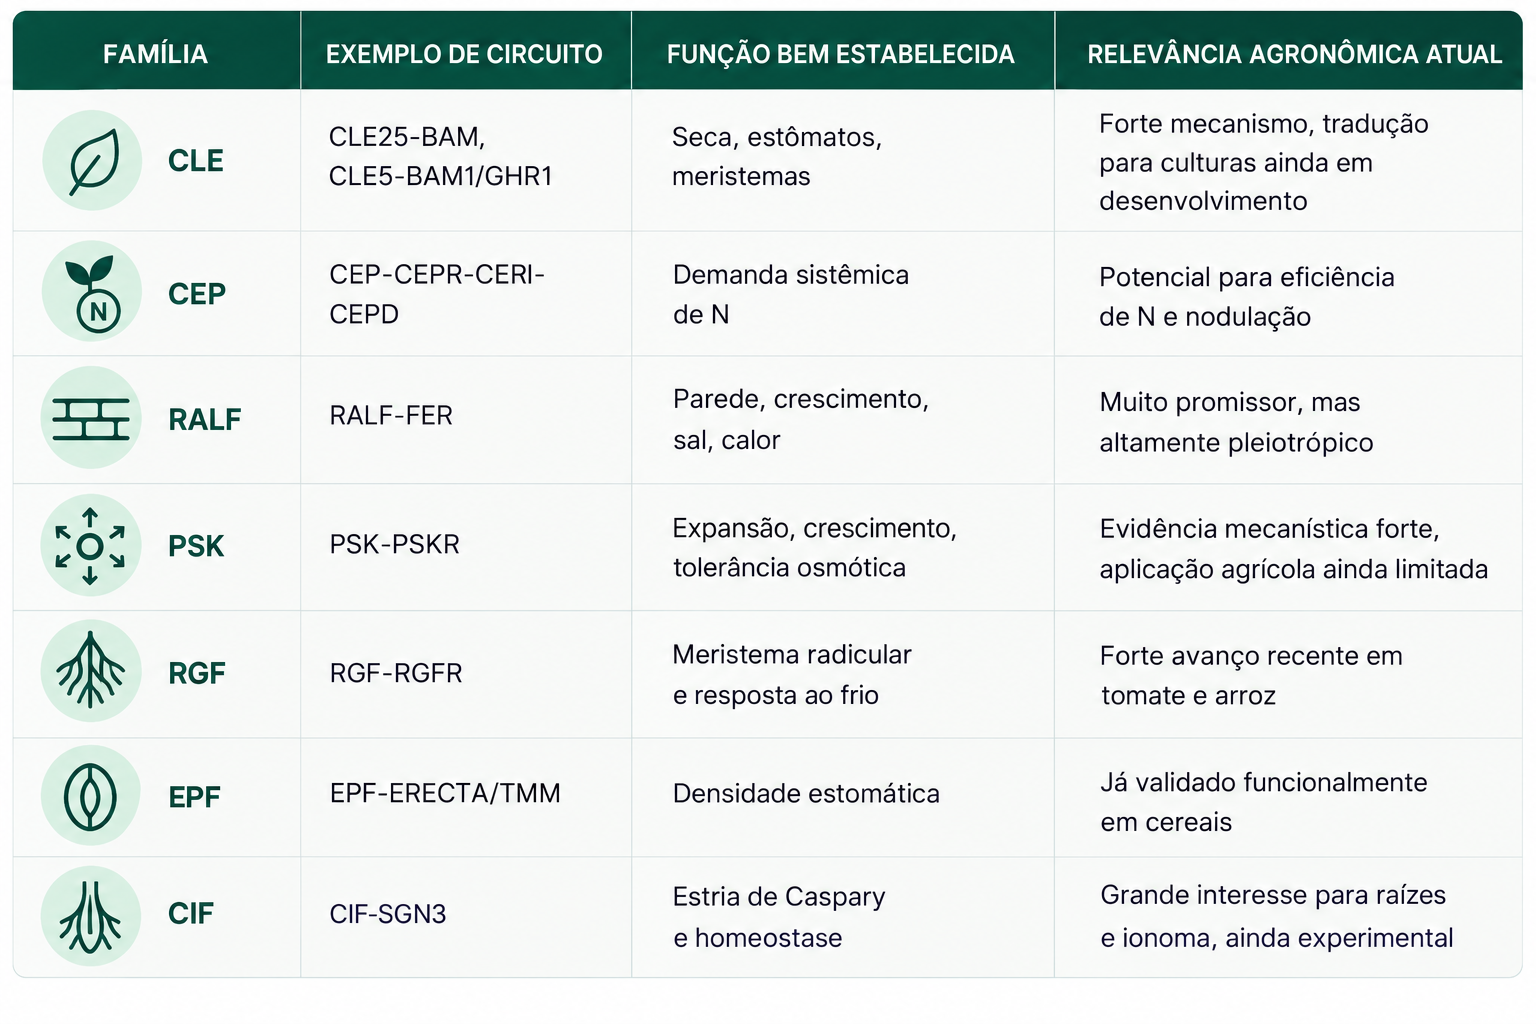
- Algumas famílias e o que elas nos ensinam
- Potencial agronômico: promissor, mas ainda longe de uma aplicação simples
- A molécula precisa estar quimicamente correta
- O peptídeo precisa chegar ao receptor
- A resposta correta depende da dose e do tempo
- Muitos resultados ainda medem sobrevivência, não produtividade
- Implicações práticas: o que os peptídeos sinalizadores mudam na interpretação da fisiologia vegetal?
- Conclusão
- Em cinco pontos
- Perguntas frequentes
- Peptídeos sinalizadores são fitormônios?
- Um peptídeo sinalizador sempre circula pela planta?
- Aplicar um peptídeo sintético reproduz o sinal natural?
- Peptídeos podem melhorar tolerância à seca?
- Peptídeos participam da nutrição vegetal?
- Já existem resultados em culturas agrícolas?
- Referências
Pequenas sequências de aminoácidos podem controlar meristemas, arquitetura radicular, nutrição, estômatos e respostas ao ambiente, conectando a percepção de um estímulo à reorganização da fisiologia da planta.
Auxina, ácido abscísico, citocinina, etileno e outros fitormônios ocupam grande parte das discussões sobre sinalização vegetal. Mas existe outra camada regulatória, menos conhecida fora da biologia molecular, que participa de algumas das decisões mais importantes da planta.
São os peptídeos sinalizadores.
Alguns possuem pouco mais de uma dezena de aminoácidos. Outros são maiores, estabilizados por pontes dissulfeto. Apesar do tamanho reduzido, conseguem informar onde uma célula deve continuar se dividindo, quando um tecido precisa se diferenciar, se existe deficiência de nitrogênio em parte do sistema radicular, se a planta está perdendo água ou se estruturas reprodutivas precisam ser protegidas de uma onda de frio.
O efeito não vem apenas da molécula em si. Em muitos casos, o gene produz um precursor maior, que precisa ser processado, clivado e quimicamente modificado antes de se tornar o sinal biologicamente ativo. Só então o peptídeo encontra seu receptor, geralmente localizado na membrana plasmática, e inicia uma cascata capaz de modificar Ca²⁺, espécies reativas de oxigênio (EROs), MAPKs, pH, atividade de transportadores e redes hormonais.
Essa arquitetura explica por que os peptídeos ocupam uma posição tão interessante na fisiologia vegetal: eles fazem a ligação entre informação localizada e resposta coordenada. E, em alguns casos, essa informação percorre a planta inteira.
A ideia central deste artigo é justamente essa:
Pequenos peptídeos funcionam como mensagens moleculares capazes de conectar percepção ambiental, comunicação entre células e reorganização da fisiologia da planta.
Neste artigo
Vamos acompanhar o caminho completo desse artigo: como o peptídeo é produzido, como o receptor o reconhece, como essas vias se integram aos fitormônios e como famílias como CLE, CEP, RALF, PSK, RGF e EPF participam do crescimento, da nutrição e da adaptação a seca, salinidade, frio e calor. No final, veremos quanto dessa biologia já chegou a culturas agrícolas e quanto ainda permanece em estágio experimental.
Mensagens pequenas, circuitos regulatórios grandes
Nem todo peptídeo sinalizador vegetal possui a mesma origem ou estrutura.
Um grupo importante é formado por peptídeos derivados de precursores secretados. Nesse conjunto aparecem famílias como CLE, CEP, RGF, PSK, PSY, CIF e IDA. Muitas de suas formas biologicamente ativas possuem aproximadamente 5 a 25 aminoácidos.
Outro grupo inclui peptídeos secretados maiores e ricos em cisteína, como os RALFs e os fatores de padrão epidérmico EPF/EPFL. As pontes dissulfeto ajudam a manter uma estrutura tridimensional necessária para o reconhecimento pelo receptor.
Há ainda sinais liberados de proteínas maiores ou produzidos por pequenas regiões codificadoras, como Peps, CAPEs e IMA/FEP.
Essa diversidade já indica que “peptídeo sinalizador” não descreve um único mecanismo.
Em alguns sistemas, o peptídeo atua a poucas células de distância. Em outros, consegue alcançar outro órgão. Alguns controlam desenvolvimento quase continuamente, enquanto outros são produzidos ou ativados somente quando surge uma condição específica.
O princípio comum está no uso de uma molécula relativamente pequena para transmitir uma informação com alta especificidade espacial e temporal.
Isso permite à planta responder de forma muito localizada.
Uma célula no meristema não precisa alterar toda a fisiologia da planta para informar às células vizinhas que o reservatório de células-tronco está grande demais. Uma região da raiz sob deficiência de N não precisa fazer todas as outras raízes se comportarem da mesma maneira. O sinal pode informar o estado daquela região e deixar que o restante da planta integre essa informação.
Essa capacidade de trabalhar em escalas diferentes, de uma parede celular até a comunicação raiz-folha, é uma das características mais interessantes desses sistemas.
Como um peptídeo se transforma em sinal
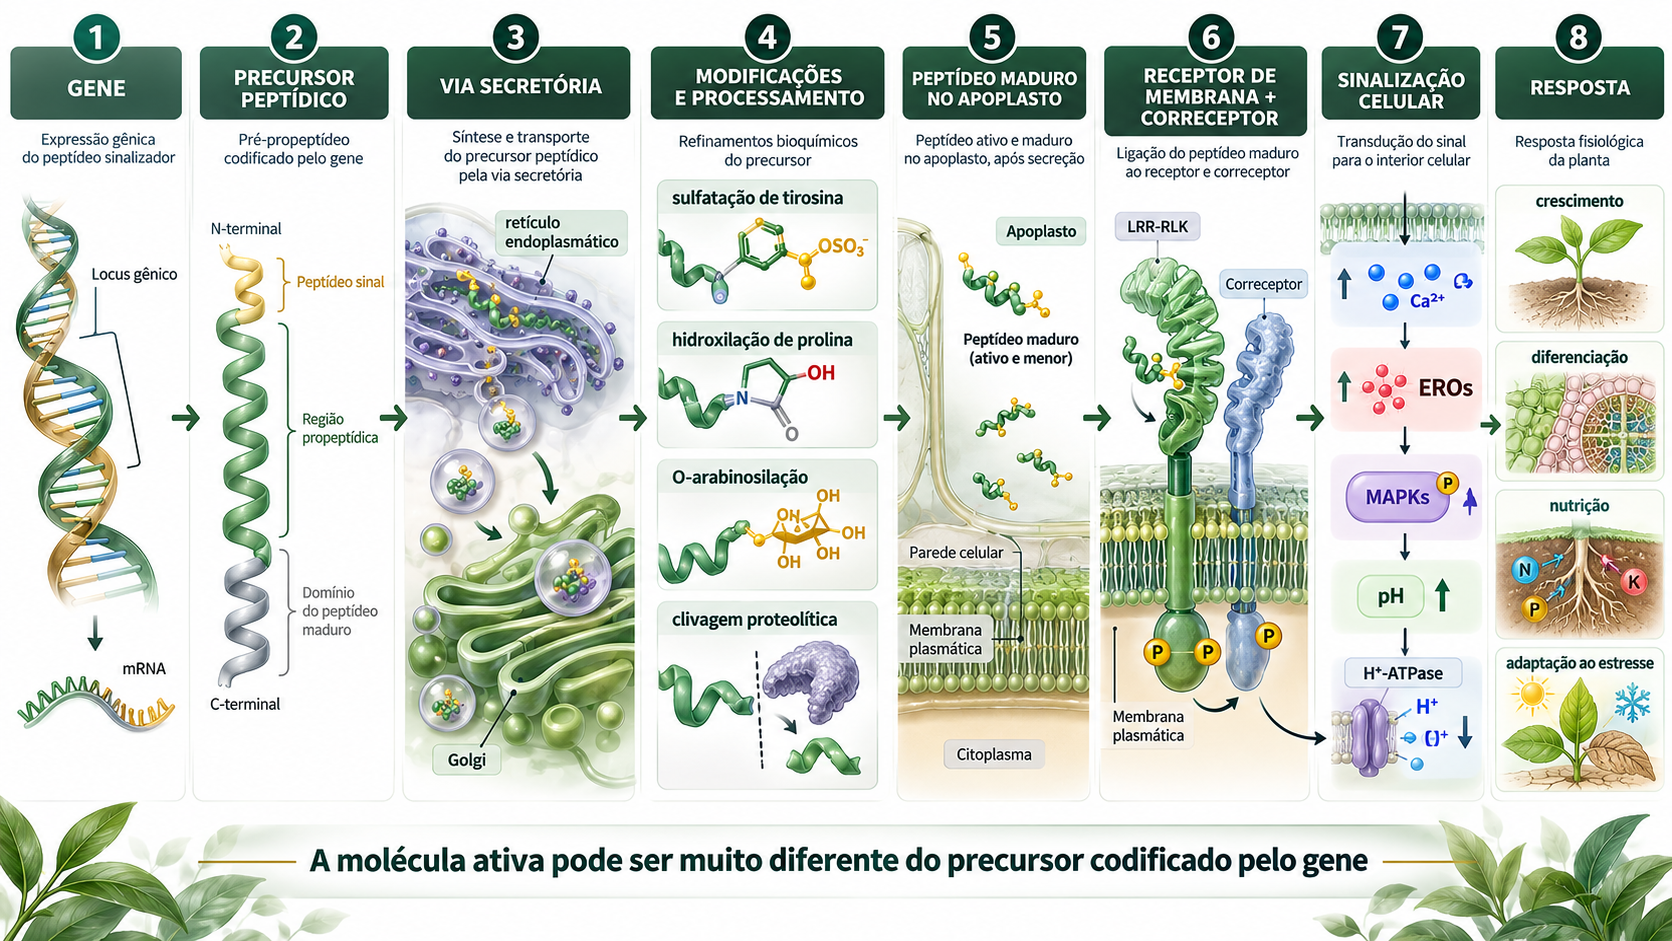
A sequência codificada no gene nem sempre corresponde diretamente à molécula reconhecida pelo receptor.
Esse detalhe é fundamental.
Em muitas famílias, a proteína inicialmente sintetizada é um prepropeptídeo muito maior que o ligante final. Ela entra no retículo endoplasmático e no Golgi, passa por processamento proteolítico e pode receber modificações químicas antes de alcançar o apoplasto.
Entre as modificações mais importantes estão:
sulfatação de tirosina,
hidroxilação de prolina,
O-arabinosilação de hidroxiprolina.
Essas modificações não são meramente decorativas.
Elas podem alterar estabilidade, conformação, processamento e afinidade pelo receptor. Em certos sistemas, remover a modificação reduz drasticamente a atividade biológica. A própria forma endógena de CLV3, por exemplo, possui arabinosilação relevante para sua atividade, enquanto RGF, PSK e CIF dependem fortemente da sulfatação para reconhecimento eficiente.
Um exemplo particularmente didático surgiu com CLE5. A forma tri-arabinosilada identificada na planta apresentou potência aproximadamente duas ordens de grandeza maior que a forma não arabinosilada na indução do fechamento estomático.
Isso tem uma consequência direta para qualquer tentativa futura de transformar peptídeos em produtos agrícolas:
sintetizar a sequência de aminoácidos correta pode não ser suficiente se a molécula endógena ativa possui modificações pós-traducionais essenciais.
O receptor transforma a mensagem química em resposta celular
A maioria dos pequenos peptídeos secretados é percebida por receptor-like kinases, RLKs, localizadas na membrana plasmática. Entre elas, destacam-se receptores com repetições ricas em leucina, os LRR-RLKs.
O peptídeo se liga ao ectodomínio do receptor. Em muitos sistemas, essa ligação favorece a associação de um correceptor, frequentemente da família SERK. A aproximação das quinases citoplasmáticas permite fosforilação e montagem do complexo sinalizador.
A partir daí, diferentes vias podem ser acionadas:
Ca²⁺
EROs
MAPKs
ROP-GTPases
H⁺-ATPases
mudanças de pH
SnRK2s
reprogramação transcricional
A estrutura geral é semelhante, mas a saída fisiológica muda conforme o receptor, o tecido, o correceptor e o estado da planta.
RALF oferece um bom exemplo de uma arquitetura diferente.
RALF23 pode ser reconhecido por um complexo envolvendo FERONIA, FER, e LLG1. A estrutura desse complexo mostrou como um peptídeo extracelular pode reunir componentes de membrana e reorganizar vias associadas a crescimento, imunidade e integridade celular.
Peptídeos e fitormônios: circuitos integrados
Tratar peptídeos e fitormônios como dois sistemas independentes é pouco útil.
Em alguns casos, o peptídeo controla a produção de um fitormônio. Em outros, converge diretamente sobre proteínas que também fazem parte de uma via hormonal. Há ainda situações em que receptor peptídico e receptor hormonal compartilham componentes regulatórios.
CLE25, por exemplo, aumenta a biossíntese de ABA.
CLE5 consegue chegar à maquinaria de fechamento estomático sem precisar primeiro aumentar a biossíntese de ABA.
CEP interage com redes de citocinina e auxina.
RALF-FER cruza com componentes de ABA e, dependendo do contexto, JA e outras vias.
PSK se integra ao sistema de brassinosteroides por meio de componentes receptoriais compartilhados.
Peps, por sua vez, podem convergir com Ca²⁺, EROs e etileno durante respostas a dano.
Portanto, não existe uma regra em que “peptídeo vem primeiro e hormônio depois”.
O que existe são circuitos de convergência.
Crescimento e desenvolvimento: onde os peptídeos organizam a planta
Os primeiros grandes avanços no estudo desses sinais vieram do desenvolvimento vegetal.
Isso faz sentido. Para construir uma planta, células precisam constantemente informar às vizinhas quem deve continuar se dividindo, quem deve se diferenciar, onde uma parede precisa ser remodelada e até quando um meristema deve permanecer ativo.
Os peptídeos oferecem exatamente esse tipo de comunicação.
CLE e o controle dos meristemas
CLV3, um membro clássico da família CLE, participa da manutenção do meristema apical caulinar.
As células-tronco produzem sinais que limitam o domínio de WUSCHEL, WUS, impedindo expansão descontrolada do reservatório de células indiferenciadas. Quando esse equilíbrio é perturbado, o tamanho do meristema e o número de órgãos produzidos podem mudar.
Outros CLEs controlam tecidos vasculares. O sistema TDIF-PXY, por exemplo, participa da proliferação cambial e impede diferenciação prematura em xilema.
O mesmo tipo de molécula, portanto, pode ser reutilizado em tecidos diferentes para organizar destinos celulares distintos.
RGF e o meristema radicular
No ápice da raiz, peptídeos RGF ajudam a manter o nicho meristemático.
RGF1 é produzido próximo ao centro quiescente e estabelece um sinal espacial que sustenta fatores PLETHORA, PLT, fundamentais para identidade e proliferação das células do meristema.
Quando o sistema RGF-RGFR é interrompido, o meristema encurta e o crescimento da raiz é comprometido.
Essa é uma diferença importante em relação à ideia de um regulador de crescimento aplicado uniformemente.
O valor fisiológico do sinal está justamente no fato de possuir origem e alcance espacial definidos.
IDA não “faz a planta crescer”, ela permite que células se separem
O peptídeo IDA é outro exemplo de precisão.
Seu papel clássico aparece na abscisão de órgãos, mas o mesmo módulo participa da emergência de raízes laterais. IDA é reconhecido por HAE/HSL2, ativa MAPKs e induz enzimas que remodelam a parede das células que recobrem o primórdio.
O efeito não é simplesmente estimular divisão ou elongação.
É permitir que um tecido atravesse outro no momento certo.
PSK e expansão celular
Phytosulfokine, PSK, participa de proliferação, expansão celular, desenvolvimento vascular e crescimento radicular.
O pentapeptídeo ativo contém duas tirosinas sulfatadas, um exemplo particularmente claro de como uma molécula extremamente pequena pode exercer atividade regulatória forte desde que sua química esteja correta.
EPFs desenham a superfície da folha
EPF1 e EPF2 regulam formação e espaçamento dos estômatos.
Esse é um caso particularmente interessante porque uma decisão tomada durante o desenvolvimento da epiderme determina posteriormente:
- condutância estomática;
- transpiração;
- entrada de CO₂;
- resfriamento foliar;
- eficiência do uso da água.
Ou seja, um sinal peptídico de desenvolvimento pode produzir uma consequência fisiológica meses depois.
Essa característica será importante quando chegarmos às aplicações agrícolas.
Nutrição e comunicação entre raiz e parte aérea
Uma raiz cresce em um ambiente extremamente heterogêneo.
Pode encontrar nitrato em uma região e deficiência poucos centímetros adiante. Água pode desaparecer primeiro em uma camada do solo enquanto outras ainda permanecem hidratadas.
A planta precisa integrar essas informações sem fazer todas as raízes responderem da mesma maneira.
É nesse contexto que a comunicação peptídica de longa distância se torna especialmente interessante.
CEP e a busca coordenada por nitrogênio
O circuito CEP é provavelmente o exemplo nutricional mais bem resolvido.
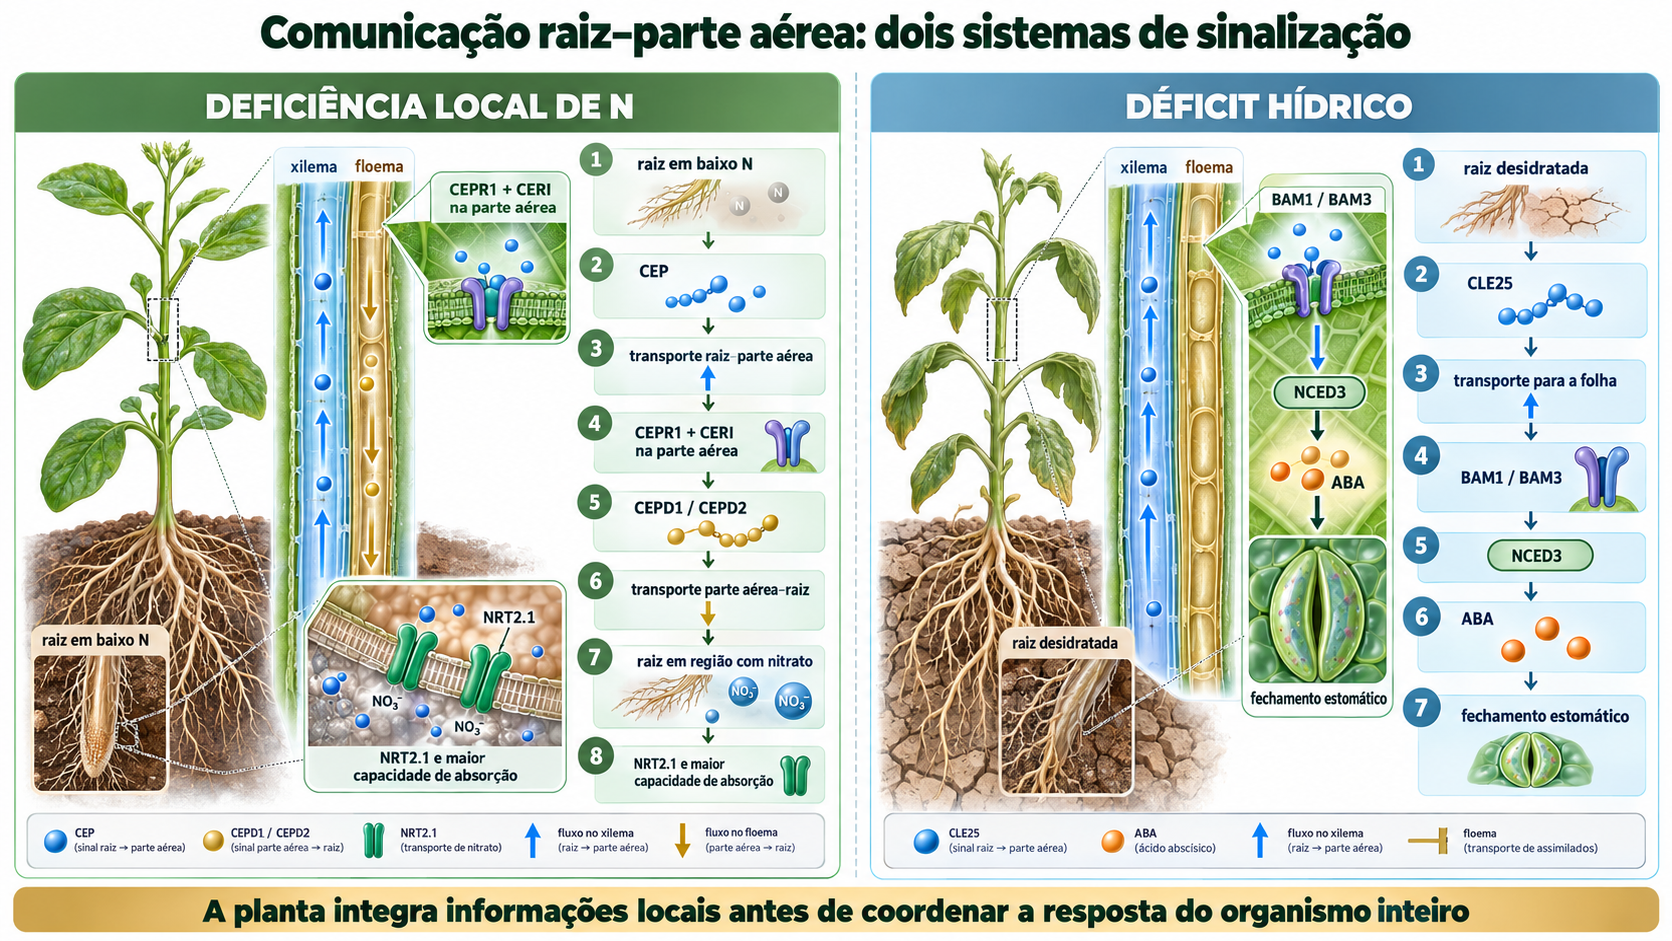
Quando uma parte do sistema radicular encontra deficiência de N, aumenta a produção de peptídeos CEP.
Esses sinais seguem em direção à parte aérea e são percebidos por receptores CEPR.
A parte aérea produz então sinais secundários, como CEPD1 e CEPD2, que descem pelo floema até as raízes. Nas regiões em que existe nitrato disponível, esses polipeptídeos aumentam a expressão de transportadores como NRT2.1 e elevam a capacidade de aquisição.
A arquitetura do circuito é elegante:
raiz com baixo N
→ CEP
→ parte aérea
→ CEPD
→ raiz que encontrou nitrato
→ maior capacidade de absorção.
Isso permite responder à demanda sistêmica sem simplesmente aumentar absorção em todas as raízes.
Em setembro de 2026, Ogawa-Ohnishi et al. acrescentaram uma nova peça ao sistema ao identificar CERI, um correceptor que se associa a CEPR1 de forma dependente de CEP. A perda de CERI compromete a sinalização sistêmica de demanda de N, mas não elimina todas as funções de CEPR1 sobre arquitetura radicular. Isso mostra que um mesmo receptor pode gerar respostas diferentes conforme o complexo molecular que forma.
O exemplo também mostra o quanto o campo continua avançando.
O sinal de N já começa a aparecer em culturas
Em leguminosas, CEPs e CLEs também participam da regulação da nodulação.
Em soja, Wu et al. (2024) identificaram GmCEP6 como regulador positivo da formação de nódulos. Superexpressão e edição por CRISPR produziram fenótipos opostos, reforçando a participação causal do peptídeo no processo.
Ainda é cedo para transformar esse resultado em estratégia direta de campo, mas ele mostra que o princípio da sinalização peptídica nutricional não está restrito a Arabidopsis.
CLE25 transforma déficit hídrico radicular em resposta foliar
A água oferece outro exemplo clássico de comunicação de longa distância.
Takahashi et al. (2018) demonstraram que a desidratação aumenta CLE25 nas raízes. O peptídeo se desloca para a parte aérea e, em associação com os receptores BAM1 e BAM3, aumenta a expressão de NCED3, favorecendo biossíntese de ABA e fechamento estomático.
O experimento foi particularmente convincente porque combinou genética, enxertia, aplicação radicular e espectrometria de massas para sustentar o movimento do sinal.
Isso deixa uma lição metodológica importante:
expressão de um gene na raiz e resposta na folha não bastam para provar que o próprio peptídeo viajou entre os órgãos.
A evidência de mobilidade precisa separar o movimento do ligante da possibilidade de a raiz ter induzido uma segunda molécula móvel.
Quando o ambiente muda: peptídeos na resposta ao estresse
Os exemplos anteriores já mostram que desenvolvimento e estresse não são sistemas completamente separados.
Uma família inicialmente conhecida por controlar um meristema pode adquirir função em seca. Um receptor associado a crescimento pode participar de tolerância à salinidade ou temperatura.
Essa reutilização de circuitos é característica da sinalização vegetal.
Seca: respostas rápidas e respostas sistêmicas
CLE25 representa uma resposta sistêmica, mas estudos recentes mostraram que a planta possui também um circuito peptídico muito mais local.
Shimotohno et al. identificaram CLE5 como sinal produzido na folha durante déficit hídrico. O peptídeo é reconhecido pelo complexo BAM1-GHR1 em células-guarda e ativa diretamente SnRK2s, incluindo OST1, desencadeando fechamento estomático sem depender de um aumento prévio da biossíntese de ABA.
Isso cria duas estratégias complementares:
CLE5, resposta local e rápida;
CLE25, comunicação sistêmica associada à acumulação de ABA.
PSK também participa da resposta hídrica, mas por outro caminho. O estresse osmótico estimula processamento de precursores de PSK, e o sistema PSK-PSKR contribui para manutenção de crescimento e recuperação.
Não existe, portanto, um “peptídeo da seca”.
Existem circuitos que atuam em diferentes tecidos e escalas de tempo.
Salinidade: parede celular, membrana e estado redox
RALF-FER é um dos sistemas mais interessantes nesse contexto.
Sob salinidade, alterações na parede e no estado da pectina interagem com componentes como LRXs, RALFs e FERONIA. A via pode modificar Ca²⁺, EROs, ABA e outros sinais.
O comportamento não é simplesmente positivo ou negativo.
Tanto perda de componentes do sistema quanto ativação excessiva podem produzir fenótipos prejudiciais. Isso indica que amplitude, duração e localização do sinal importam tanto quanto a identidade da molécula.
AtPep3 e CLE14 representam outros exemplos de resposta ao sal. O primeiro participa de circuitos de alarme que compartilham componentes com imunidade, enquanto CLE14 foi associado à regulação de sistemas antioxidantes e senescência.
A mensagem fisiológica é mais ampla:
tolerância não depende de maximizar uma via de defesa, mas de ativá-la na intensidade necessária sem bloquear crescimento.
Calor: a membrana também participa da interpretação do sinal
Em 2026, Wang et al. mostraram um mecanismo particularmente sofisticado.
Sob calor moderado, RALF34 ativa FERONIA, que passa a se organizar em nanodomínios ricos em esteróis na membrana plasmática. Esses nanoclusters concentram componentes de sinalização e favorecem o eixo HSF-HSP associado à aclimatação térmica.
Quando a temperatura se torna extrema, a organização desses nanoclusters é perdida.
O trabalho introduz uma interpretação interessante: o sistema não funciona apenas como um interruptor molecular.
A própria organização física da membrana ajuda a distinguir calor potencialmente aclimatável de uma condição mais destrutiva.
Frio: proteger a reprodução sem penalizar a planta em condição normal
Um dos resultados agronomicamente mais relevantes apareceu também em 2026.
Chen et al. identificaram no tomate os peptídeos SlRGF9 e SlRGF10, induzidos por frio nas anteras.
Eles são percebidos pelo complexo SlRGFR6-SlSERK e promovem entrada de Ca²⁺ por canais SlCNGC16/18. Essa resposta ajuda a preservar o momento correto da morte celular programada do tapete e, com isso, o desenvolvimento do pólen.
O aspecto mais interessante é o fenótipo.
Plantas com perda de SlRGF9/10 eram quase normais em temperatura favorável, mas apresentavam aborto de pólen sob frio. A ativação moderada do sistema reduziu perdas de rendimento causadas pelo frio em tomate em até 52%. Em arroz, ortólogos da mesma via recuperaram 18,3% da perda de rendimento de grãos nas condições experimentais.
Esse tipo de alvo é particularmente atraente porque atua principalmente quando o problema aparece.
O que já sabemos em culturas agrícolas
Grande parte da resolução molecular sobre peptídeos ainda vem de Arabidopsis.
Isso precisa ser dito com clareza.
Demonstrar um receptor, uma MAPK ou uma modificação pós-traducional em uma planta-modelo não significa que manipular o ortólogo em milho, soja, café ou manga produzirá a mesma resposta agronômica.
Alguns exemplos em culturas, contudo, já permitem sair dessa fase puramente conceitual.
EPF em cevada
Hughes et al. (2017) aumentaram a expressão de HvEPF1 e reduziram a densidade estomática da cevada.
As plantas apresentaram maior eficiência do uso da água, melhor tolerância à seca e maior conservação da água do solo sem redução significativa do rendimento de grãos nas condições do experimento.
Isso parece sugerir uma estratégia simples: reduzir o número de estômatos.
O trigo mostrou por que não é tão simples.
EPF em trigo e o custo de exagerar no sinal
Dunn et al. (2019) também reduziram densidade estomática por manipulação de EPF em trigo.
Reduções moderadas, inferiores a aproximadamente 50% nas condições avaliadas antes do perfilhamento, aumentaram a eficiência intrínseca do uso da água sem reduzir rendimento.
Mas reduções mais severas penalizaram produtividade.
Esse exemplo sintetiza boa parte do desafio da engenharia peptídica:
o objetivo raramente é maximizar a intensidade do sinal. É encontrar a intensidade que melhora a adaptação sem criar um novo fator limitante.
Menos estômatos podem conservar água.
Estômatos demais reduzidos também podem limitar CO₂ e resfriamento foliar.
CEP em soja
A identificação de GmCEP6 como regulador positivo da nodulação adiciona um exemplo de sinalização peptídica diretamente ligado à nutrição de uma cultura de enorme importância agrícola.
Ainda assim, mudar número de nódulos geneticamente não é equivalente a demonstrar aumento de rendimento em diferentes ambientes de produção.
Essa etapa continua faltando.
RGF em tomate e arroz
O sistema SlRGF9/10 oferece até agora um dos exemplos mais fortes de tradução da biologia de peptídeos para um caráter agronomicamente mensurável.
Além da demonstração molecular do receptor e do Ca²⁺, o estudo avançou até rendimento sob frio em tomate e arroz.
É justamente esse tipo de evidência que o campo precisa multiplicar.
Algumas famílias e o que elas nos ensinam
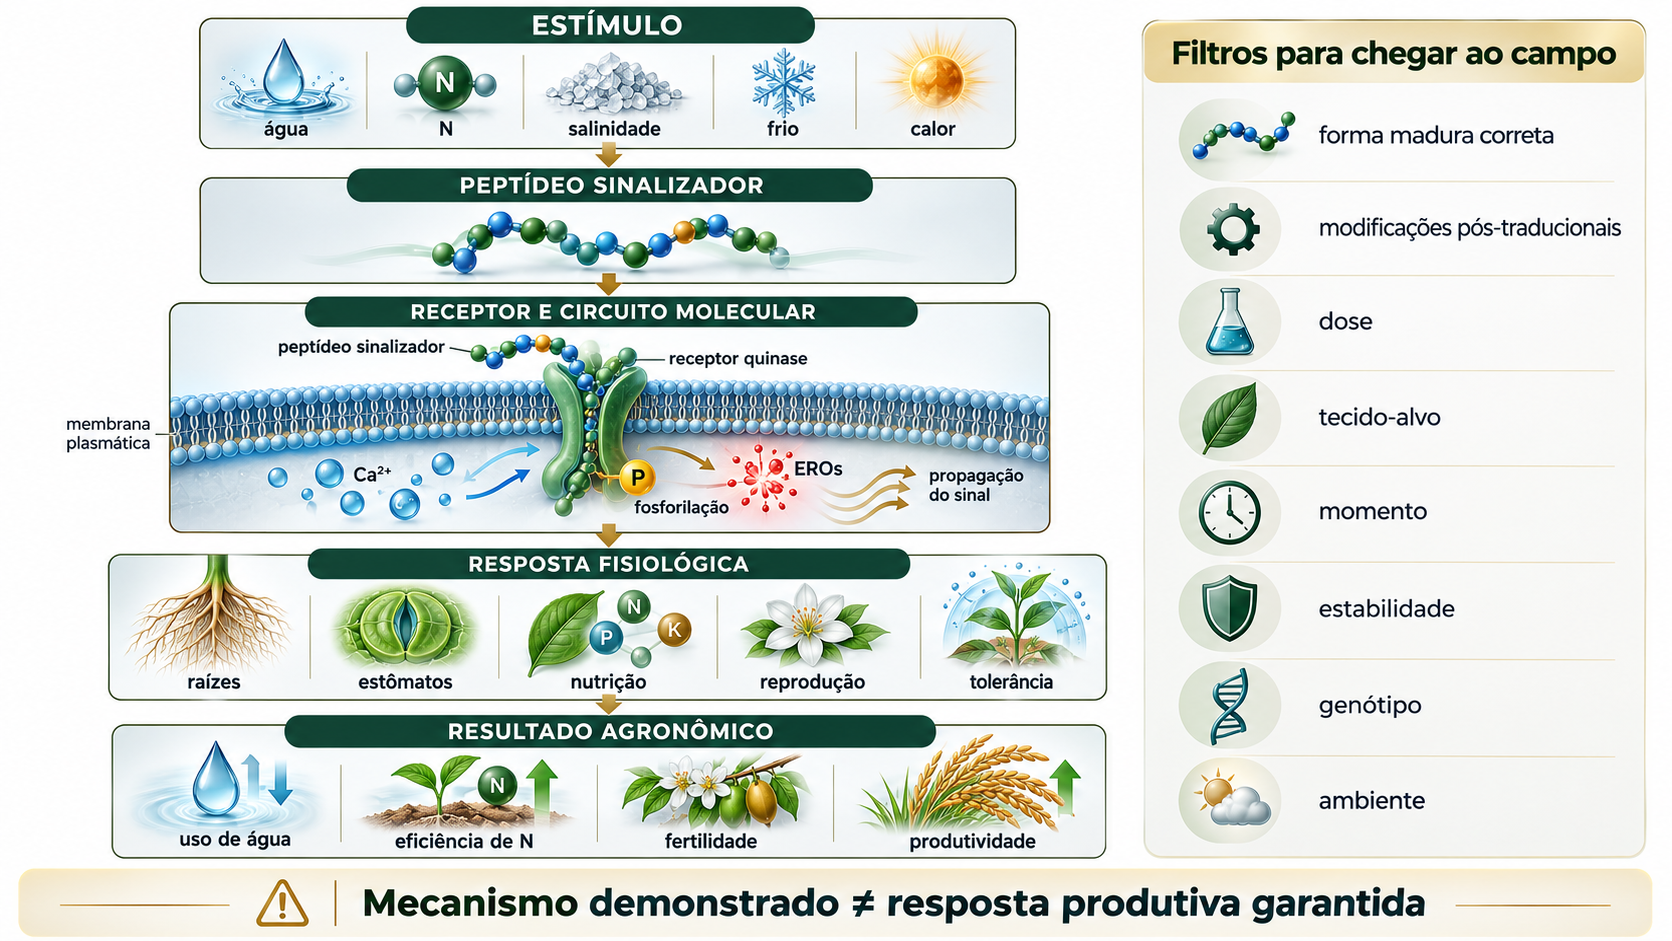
Potencial agronômico: promissor, mas ainda longe de uma aplicação simples
Ao observar esses resultados, é natural imaginar peptídeos sinalizadores como uma nova classe de bioestimulantes.
Essa extrapolação ainda exige cautela.
Aplicar um peptídeo sintético externamente é muito diferente de modificar sua expressão dentro do tecido em que naturalmente funciona.
Existem pelo menos quatro obstáculos.
A molécula precisa estar quimicamente correta
Sulfatação, hidroxilação, arabinosilação e dobramento podem determinar a atividade.
Um produto contendo apenas a sequência “genética” do ligante pode não reproduzir a molécula endógena.
Esse é um dos pontos mais bem demonstrados para CLEs, RGF, CIF e PSK.
O peptídeo precisa chegar ao receptor
Proteases podem degradá-lo.
Cutícula, parede celular e distância até o tecido alvo restringem acesso.
Um peptídeo destinado a um receptor de células vasculares não necessariamente chegará a esse receptor após uma pulverização foliar.
Formulação e via de aplicação serão tão importantes quanto a sequência.
A resposta correta depende da dose e do tempo
O exemplo de EPF em trigo mostra isso bem.
Reduzir moderadamente estômatos pode melhorar eficiência hídrica.
Reduzir demais pode prejudicar rendimento.
O mesmo princípio vale para muitos CLEs, RALFs e CEPs.
Sinais constitutivamente elevados podem gerar:
- nanismo;
- alteração vascular;
- menor fotossíntese;
- fertilidade reduzida;
- desequilíbrio hormonal.
Os levantamentos científicos indicam, por isso, maior interesse em promotores específicos de tecido ou induzíveis por estresse, edição regulatória e modulação quantitativa de receptores do que em simplesmente superexpressar permanentemente um peptídeo.
Muitos resultados ainda medem sobrevivência, não produtividade
É possível melhorar sobrevivência de plântulas sob NaCl em placa e não obter vantagem produtiva em uma lavoura.
É possível aumentar tolerância a uma seca abrupta e reduzir biomassa em condição sem estresse.
É possível melhorar eficiência do uso da água e comprometer resfriamento foliar em clima quente.
A tradução agronômica exige medir:
crescimento ao longo do ciclo, fenologia, uso de água, nutrição, fertilidade, rendimento e qualidade, e não apenas sobrevivência ou expressão gênica.
Essa é uma das lacunas mais importantes identificadas na literatura atual.
Implicações práticas: o que os peptídeos sinalizadores mudam na interpretação da fisiologia vegetal?
Mesmo antes de existirem produtos comerciais amplamente validados, os peptídeos já mudam a maneira como interpretamos a planta.
Eles mostram que a resposta ao ambiente não depende apenas de perceber um estímulo e alterar a concentração de um hormônio clássico.
Entre essas duas etapas podem existir sinais altamente específicos que informam:
qual tecido percebeu o problema;
onde ele aconteceu;
qual intensidade deve ser comunicada;
qual órgão precisa responder;
e por quanto tempo a resposta deve permanecer ativa.
A deficiência de N localizada é um bom exemplo.
A planta não reage simplesmente à concentração média de N em todo o solo. O circuito CEP permite combinar heterogeneidade espacial, demanda sistêmica e disponibilidade local de nitrato.
A seca também.
CLE5 e CLE25 mostram que o fechamento estomático pode ser regulado por circuitos de escalas temporais diferentes: um local e rápido, outro integrado à comunicação raiz-parte aérea e ao ABA.
O frio reprodutivo em tomate acrescenta outra dimensão: um peptídeo pode proteger um processo específico, o desenvolvimento do pólen, sem necessariamente alterar fortemente o crescimento da planta em condição normal.
É essa precisão que torna a área tão promissora.
Conclusão
Peptídeos sinalizadores adicionam uma camada de comunicação à fisiologia vegetal que ajuda a explicar como plantas coordenam milhares de células submetidas a ambientes diferentes.
A mensagem pode começar em um meristema, em uma raiz deficiente em N, em uma célula submetida à desidratação ou em uma antera exposta ao frio.
O peptídeo é produzido, processado e muitas vezes modificado.
Depois encontra um receptor.
A partir desse encontro, redes de Ca²⁺, EROs, MAPKs, pH, quinases e fitormônios reorganizam a resposta celular.
CLE pode definir células-tronco ou comunicar déficit hídrico.
CEP conecta disponibilidade heterogênea de N à aquisição sistêmica.
RALF integra parede, membrana e estresse.
PSK sustenta crescimento e recuperação.
RGF mantém o meristema radicular e, em culturas agrícolas, já mostrou papel direto na proteção reprodutiva contra o frio.
EPF demonstra que mudar um sinal peptídico durante o desenvolvimento pode alterar a eficiência hídrica meses depois.
O campo já avançou muito além da simples descoberta de sequências.
Hoje conhecemos ligantes, modificações, receptores, correceptores e cascatas inteiras.
O desafio agora está na tradução.
A característica que torna esses sinais tão poderosos biologicamente, sua alta especificidade espacial, temporal e química, é justamente o que torna sua manipulação agronômica difícil.
Por isso, o futuro dos peptídeos na agricultura provavelmente dependerá menos de “aplicar um sinal de crescimento” e mais de aprender a modular circuitos específicos, no tecido certo, no momento certo e na intensidade necessária.
Em cinco pontos
- O peptídeo ativo frequentemente não é igual à sequência inicialmente produzida pelo gene. Clivagem, sulfatação, hidroxilação e arabinosilação podem ser decisivas.
- Receptores de membrana transformam peptídeos em respostas celulares, ativando Ca²⁺, EROs, MAPKs, pH e outras vias.
- Peptídeos e fitormônios formam redes integradas, como CLE25-ABA, CEP-citocinina, RALF-FER-ABA e PEP-etileno.
- Já existem exemplos agronomicamente relevantes em culturas, incluindo EPF em cevada e trigo e RGF em tomate e arroz.
- O maior desafio não é ativar o sinal, mas acertar sua intensidade, tecido e duração sem penalizar crescimento ou produtividade.
Perguntas frequentes
Peptídeos sinalizadores são fitormônios?
Muitos autores os tratam como hormônios peptídicos. O importante é reconhecer que eles atuam como sinais regulatórios específicos e se integram intensamente aos fitormônios clássicos.
Um peptídeo sinalizador sempre circula pela planta?
Não. Muitos atuam apenas localmente ou em poucas camadas celulares. CEP e CLE25 são exemplos bem documentados de comunicação sistêmica, enquanto RGF e IDA operam predominantemente em escalas locais.
Aplicar um peptídeo sintético reproduz o sinal natural?
Não necessariamente. Modificações pós-traducionais, conformação, estabilidade, dose, localização e acesso ao receptor podem alterar drasticamente a atividade.
Peptídeos podem melhorar tolerância à seca?
Existem mecanismos fortes envolvendo CLE5, CLE25, PSK e EPF. Porém, tolerância fisiológica e ganho de produtividade não são equivalentes, e a tradução depende da cultura e do ambiente.
Peptídeos participam da nutrição vegetal?
Sim. O circuito CEP é um dos sistemas mais bem demonstrados para comunicação sistêmica da demanda por N. Outros peptídeos também participam de homeostase mineral, barreiras radiculares e nodulação.
Já existem resultados em culturas agrícolas?
Sim. Há exemplos em cevada, trigo, tomate, arroz, soja e leguminosas-modelo. Ainda assim, grande parte da resolução mecanística continua vindo de Arabidopsis.
Referências
Chen, S. et al. 2026. Cold-induced peptide signalling secures pollen resilience and crop yield. Nature, 656, 173-182. DOI: 10.1038/s41586-026-10603-7. Nature
Dunn, J. et al. 2019. Reduced stomatal density in bread wheat leads to increased water-use efficiency. Journal of Experimental Botany, 70, 4737-4748. DOI: 10.1093/jxb/erz248. OUP Academic
Hughes, J. et al. 2017. Reducing Stomatal Density in Barley Improves Drought Tolerance without Impacting on Yield. Plant Physiology, 174, 776-787. DOI: 10.1104/pp.16.01844. OUP Academic
Nakayama, T. et al. 2017. A peptide hormone required for Casparian strip diffusion barrier formation in Arabidopsis roots. Science, 355, 284-286. DOI: 10.1126/science.aai9057. PubMed
Ogawa-Ohnishi, M. et al. 2026. An LRR co-receptor kinase essential for systemic nitrogen-demand signalling. Nature Plants, 12, 1698-1706. DOI: 10.1038/s41477-026-02391-9. Nature
Ohkubo, Y. et al. 2017. Shoot-to-root mobile polypeptides involved in systemic regulation of nitrogen acquisition. Nature Plants, 3, 17029. DOI: 10.1038/nplants.2017.29. Nature
Olsson, V. et al. 2019. Look Closely, the Beautiful May Be Small: Precursor-Derived Peptides in Plants. Annual Review of Plant Biology, 70, 153-186. DOI: 10.1146/annurev-arplant-042817-040413. Annual Reviews
Shimotohno, A. et al. 2025/2026. Local peptide signalling induces stomatal closure under drought stress. Nature Communications, 17, 177. DOI: 10.1038/s41467-025-66392-6. Nature
Stührwohldt, N. et al. 2021. Phytosulfokine precursor processing by subtilase SBT3.8 and PSK signaling improve drought stress tolerance in Arabidopsis. Journal of Experimental Botany, 72. DOI: 10.1093/jxb/erab017. OUP Academic
Tabata, R. et al. 2014. Perception of root-derived peptides by shoot LRR-RKs mediates systemic N-demand signaling. Science, 346, 343-346. DOI: 10.1126/science.1257800. PubMed
Takahashi, F. et al. 2018. A small peptide modulates stomatal control via abscisic acid in long-distance signalling. Nature, 556, 235-238. DOI: 10.1038/s41586-018-0009-2. Nature
Wang, K. et al. 2026. FERONIA orchestrates plasma membrane nanoclusters for plant thermotolerance. Science, 392, 885-890. DOI: 10.1126/science.aeb1752. PubMed
Wu, S. et al. 2024. Soybean CEP6 Signaling Peptides Positively Regulate Nodulation. Agronomy, 14, 988. DOI: 10.3390/agronomy14050988. MDPI
Xiao, Y. et al. 2019. Mechanisms of RALF peptide perception by a heterotypic receptor complex. Nature, 572, 270-274. DOI: 10.1038/s41586-019-1409-7. Nature
Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.