Neste artigo25 tópicos
- A raiz não cresce sozinha. Ao redor dela existe uma comunidade que transforma nutrientes, disputa recursos, produz sinais e interfere no crescimento, na nutrição e na proteção da planta.
- Neste artigo, você vai entender
- A raiz não vive sozinha
- Quando o microbioma muda a nutrição da planta
- Nitrogênio: quando a biologia adiciona N ao sistema
- Fósforo: transformar disponibilidade, não criar P
- Ferro: a planta modifica a comunidade porque precisa de um nutriente
- Micorrizas: ampliar funcionalmente o sistema radicular
- Uma síntese útil
- A rizosfera também é um sistema de comunicação
- Por que algumas comunidades protegem a planta
- Mais diversidade significa mais produtividade?
- O agricultor não maneja espécies, maneja o habitat
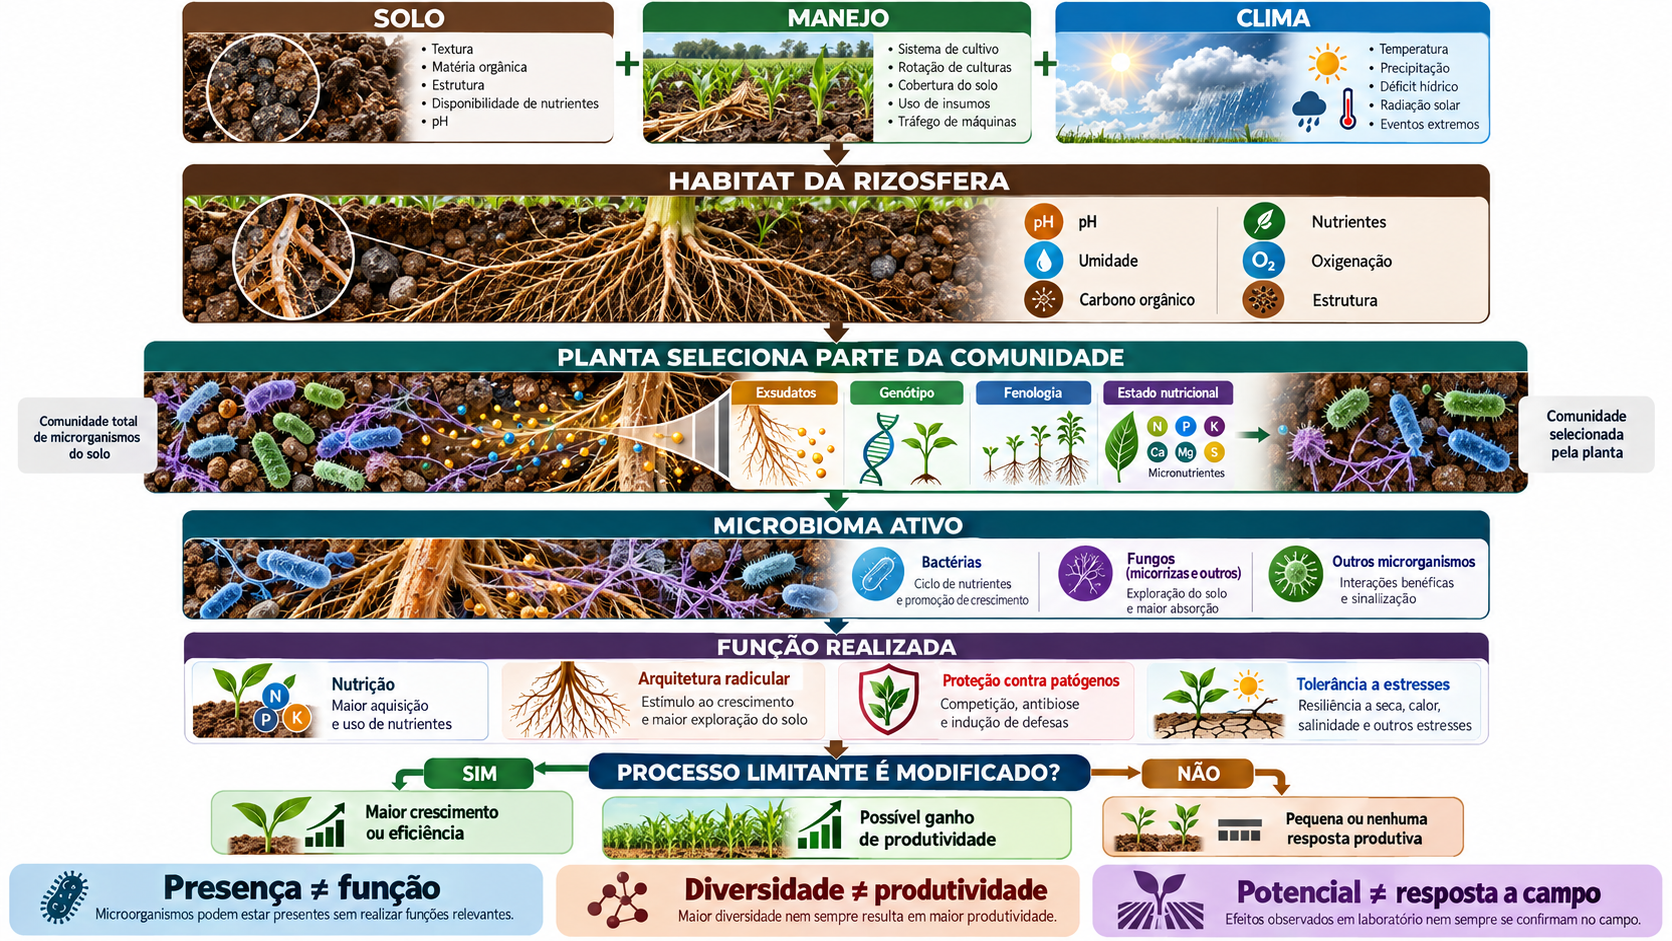
- Do microbioma à produtividade: onde a evidência é realmente forte
- Implicações práticas: o que isso muda no manejo do microbioma?
- Conclusão
- Em cinco pontos
- Perguntas frequentes
- Quanto maior a diversidade microbiana, melhor o solo?
- Microrganismos podem substituir fertilizantes?
- Micorriza sempre aumenta produtividade?
- Fertilização mineral prejudica o microbioma?
- Cultura de cobertura aumenta atividade microbiana?
- Como saber se um inoculante tem chance de funcionar?
- Referências
A raiz não cresce sozinha. Ao redor dela existe uma comunidade que transforma nutrientes, disputa recursos, produz sinais e interfere no crescimento, na nutrição e na proteção da planta.
Uma raiz nunca cresce isolada do restante do solo.
Na região que a circunda, bactérias, fungos, arqueias, protistas e vírus utilizam compostos liberados pela própria planta, transformam nutrientes, competem por espaço, produzem metabólitos e modificam continuamente o ambiente químico da rizosfera.
A planta também não é passiva nesse processo. Ela altera a quantidade e a composição dos exsudatos, modifica o pH ao redor das raízes, absorve seletivamente nutrientes e remodela sua arquitetura conforme o genótipo, o estádio de desenvolvimento e o estado nutricional. Com isso, apenas uma parcela dos microrganismos presentes no solo consegue prosperar junto à raiz.
O resultado é uma relação de mão dupla: a planta modifica o microbioma, e o microbioma modifica a planta.
Essa visão é diferente da ideia de que o microbioma seja simplesmente uma coleção de organismos “benéficos” vivendo no solo. A literatura atual o interpreta como um componente funcional do sistema solo-planta, envolvido em aquisição de nutrientes, crescimento, imunidade e tolerância a estresses.
Para a agricultura, portanto, a pergunta mais interessante não é se um solo possui muitos ou poucos microrganismos.
É outra:
Quais funções essa comunidade está realizando e elas estão modificando algum processo que realmente limita o desempenho da planta?
É a partir dessa pergunta que se torna possível conectar microbioma, nutrição e produtividade sem transformar microbiologia do solo em uma explicação genérica para qualquer resposta agronômica.
Neste artigo, você vai entender
Como a planta seleciona parte do microbioma disponível no solo, de que forma essas comunidades interferem na aquisição de nutrientes e na arquitetura radicular, por que algumas comunidades ajudam a suprimir doenças, por que maior diversidade não significa necessariamente maior produtividade e, principalmente, como o manejo agrícola modifica o habitat em que essas funções microbianas são expressas.
A raiz não vive sozinha
Quando falamos em microbioma do solo, é fácil imaginar uma comunidade distribuída de forma relativamente uniforme ao redor das plantas.
Não é isso que acontece.
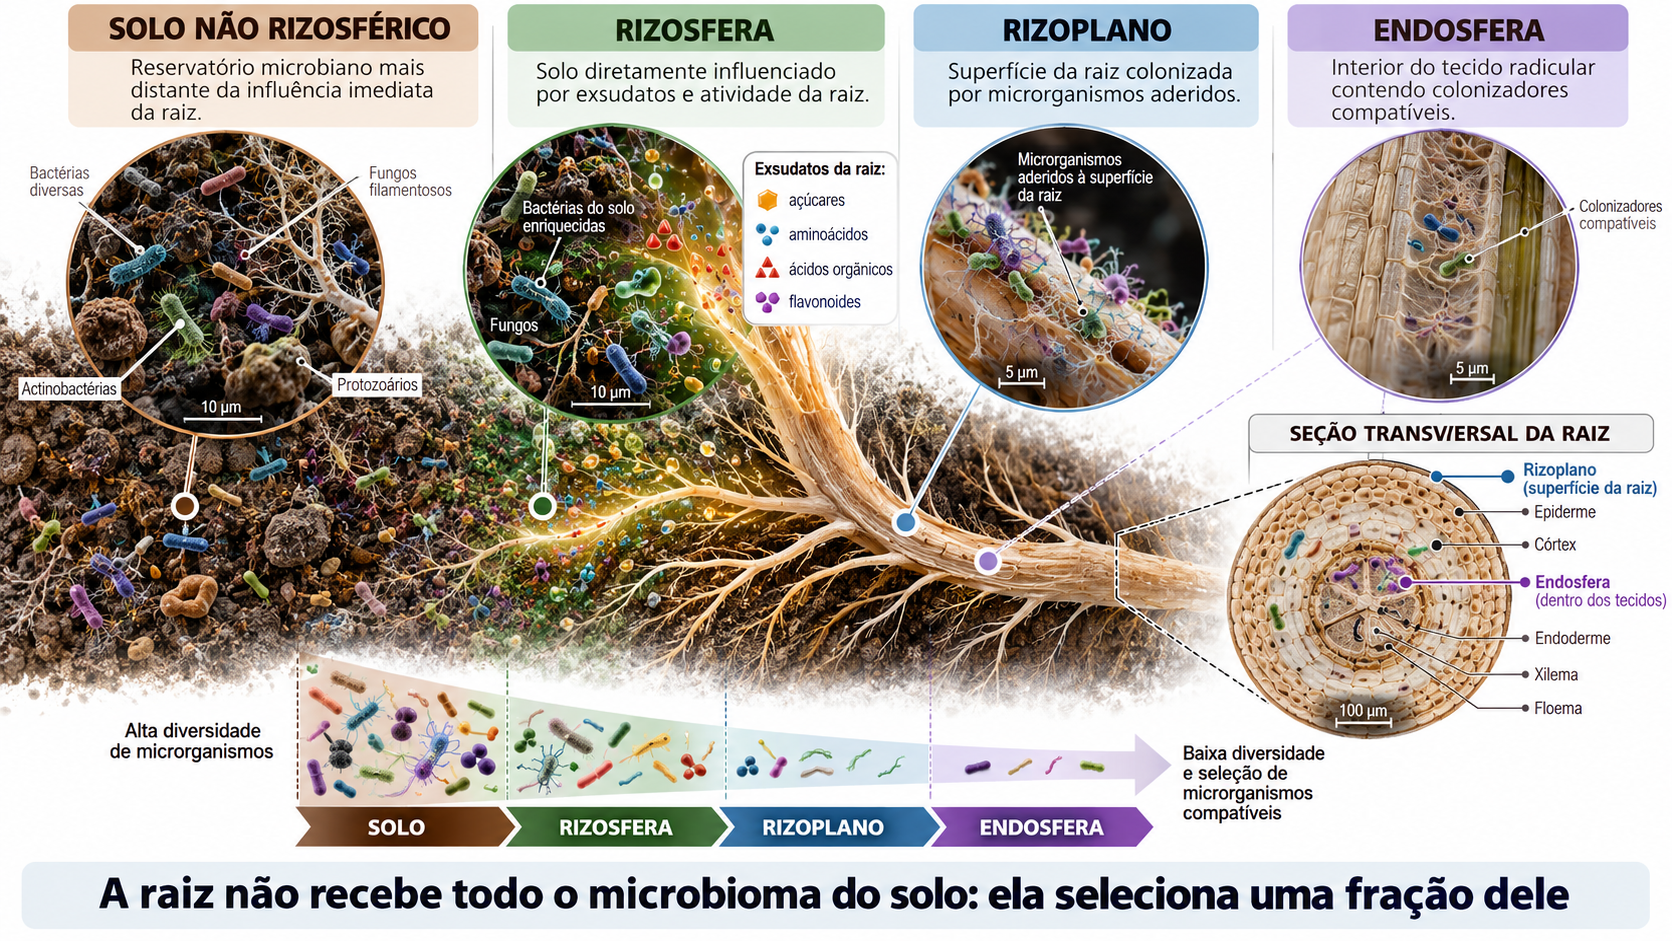
O solo não rizosférico funciona como um grande reservatório de organismos. À medida que nos aproximamos da raiz, porém, a influência da planta aumenta. Forma-se primeiro a rizosfera, a região do solo diretamente modificada pela atividade radicular. Na superfície da raiz está o rizoplano. Alguns organismos conseguem avançar ainda mais e colonizar a endosfera, no interior dos tecidos.
Esse percurso representa um filtro ecológico progressivamente mais intenso.
Nem todo microrganismo presente no solo consegue utilizar os compostos liberados pela raiz. Menos organismos ainda conseguem aderir ao rizoplano, tolerar o sistema imune vegetal e colonizar tecidos internos.
Essa seleção pode inclusive reduzir a riqueza local. Uma síntese global discutida nos levantamentos deste artigo encontrou menor riqueza bacteriana na rizosfera em comparação ao solo não rizosférico, mas enriquecimento de funções relacionadas à fixação de N, ureólise e decomposição de diferentes substratos. O impacto das comunidades microbiana.
Isso leva a uma distinção importante:
uma comunidade mais selecionada pode conter menos táxons e, ainda assim, ser mais especializada funcionalmente.
Parte dessa seleção começa com o carbono.
As raízes liberam açúcares, aminoácidos, ácidos orgânicos, compostos fenólicos, flavonoides, cumarinas e vários outros metabólitos. Esses compostos não atuam apenas como sinais. Muitos são fontes de carbono e energia.
Zhalnina et al. (2018), trabalhando com Avena barbata, mostraram que a composição química dos exsudatos muda durante o desenvolvimento da planta e que diferentes bactérias possuem preferências metabólicas específicas por esses compostos. A sucessão química dos exsudatos, portanto, ajudou a explicar a sucessão da própria comunidade microbiana.
A raiz não precisa reconhecer individualmente cada bactéria “boa”. Ela pode alterar a economia de recursos da rizosfera e, com isso, favorecer organismos metabolicamente compatíveis.
O estado nutricional modifica essa conversa.
Em milho sob deficiência de N, Yu et al. (2021) demonstraram que flavonas liberadas pelas raízes favoreceram bactérias da família Oxalobacteraceae. Esses organismos contribuíram para maior aquisição de N e melhor desempenho da planta. O trabalho também mostrou que arquitetura radicular e composição do microbioma não eram processos independentes.
O mesmo princípio aparece para outros nutrientes.
Sob deficiência de Fe, a planta modifica os compostos liberados pelas raízes. Em Arabidopsis, Harbort et al. (2020) demonstraram que cumarinas e microbiota interagem de forma causal para melhorar a nutrição férrica.
Portanto, o microbioma da rizosfera emerge da interação entre três grandes filtros:
o conjunto de organismos disponível no solo, a planta e o ambiente edáfico.
É essa combinação que determina quem consegue permanecer próximo à raiz e quais funções podem aparecer.
Quando o microbioma muda a nutrição da planta
A forma mais direta de enxergar a importância agronômica do microbioma é acompanhar o caminho que um nutriente precisa percorrer até entrar na planta.
Em alguns casos, microrganismos acrescentam uma nova entrada ao sistema.
Em outros, transformam compostos que já estavam no solo.
Em outros ainda, ampliam fisicamente o volume explorado.
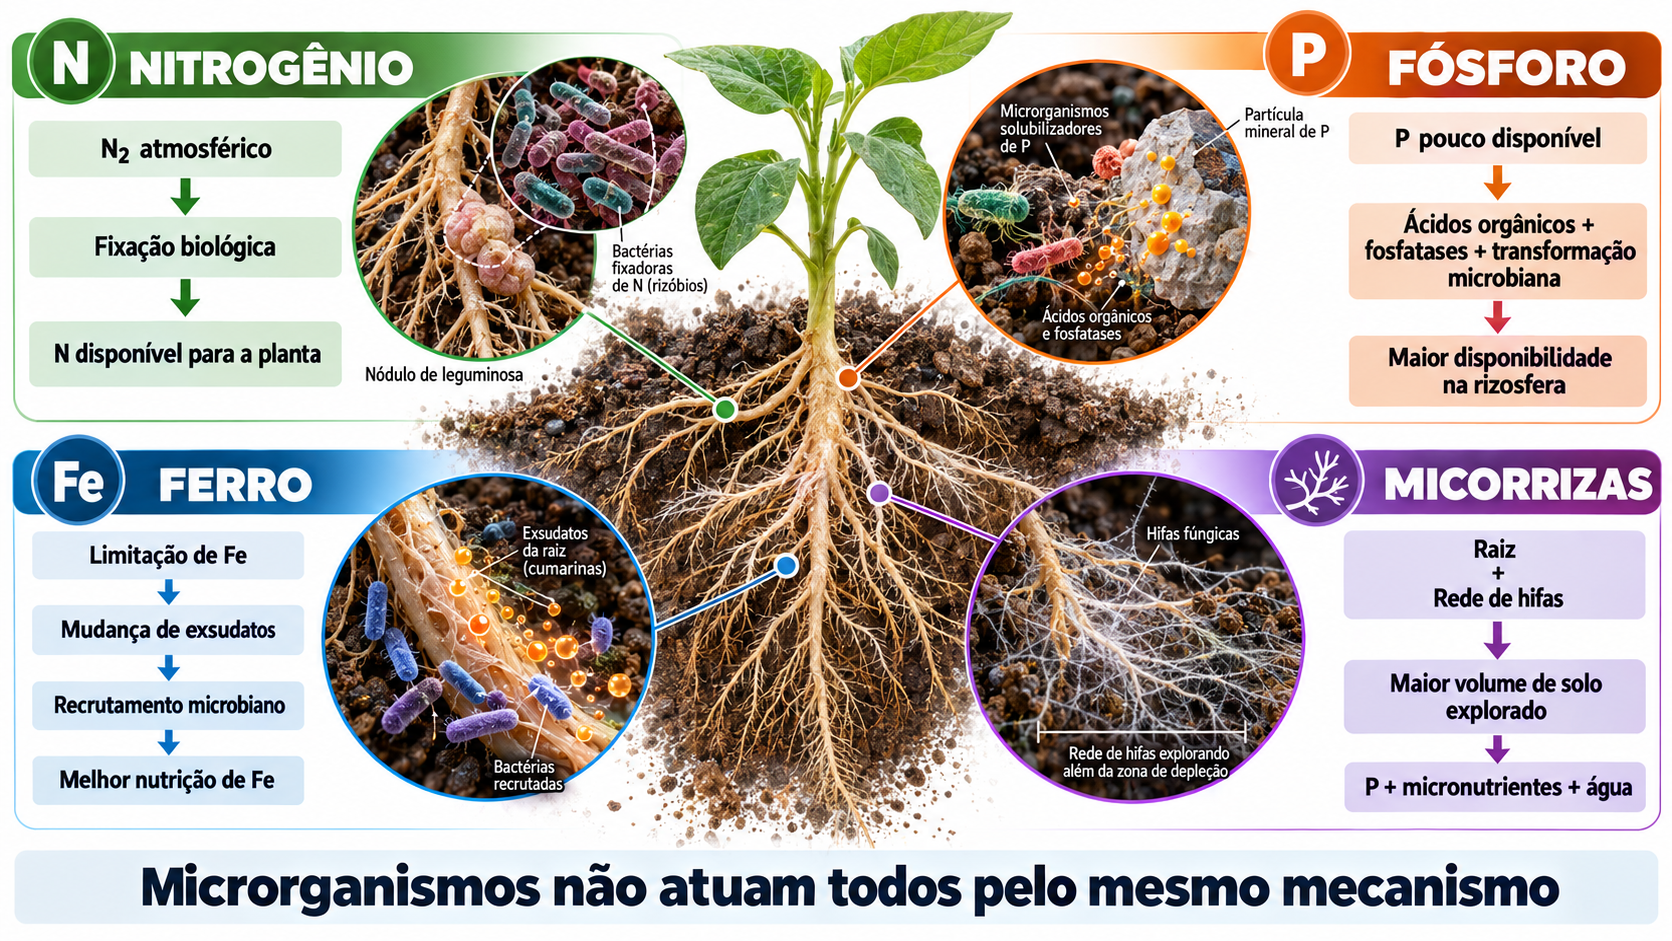
Por isso, expressões como “microrganismo promotor da nutrição” escondem mecanismos profundamente diferentes.
Nitrogênio: quando a biologia adiciona N ao sistema
A fixação biológica é o exemplo mais consolidado.
Na simbiose entre leguminosas e rizóbios, o N₂ atmosférico é convertido em formas metabolicamente utilizáveis dentro dos nódulos. Nesse caso, a associação microbiana não apenas redistribui um nutriente existente no solo. Ela modifica a entrada de N no sistema produtivo.
É provavelmente o melhor exemplo de uma função microbiana que se tornou tecnologia agronômica de grande escala.
Mesmo assim, o desempenho depende de compatibilidade entre hospedeiro e estirpe, pH, disponibilidade de nutrientes, condições físicas do solo e sobrevivência do inoculante.
Isso já antecipa uma regra que se repetirá ao longo deste artigo:
capacidade genética de realizar uma função não significa que essa função será expressa com a mesma intensidade em qualquer solo.
Fósforo: transformar disponibilidade, não criar P
Com P, a lógica é diferente.
Microrganismos podem produzir fosfatases, ácidos orgânicos e prótons, além de alterar a química ao redor da raiz. Isso pode favorecer mineralização de P orgânico ou modificar a disponibilidade de determinadas formas inorgânicas.
Mas nenhum desses processos significa “produzir fósforo”.
O elemento precisa estar presente.
Mineralogia, pH, capacidade de adsorção, forma química do P, umidade, demanda da planta e proximidade das raízes continuam determinando a magnitude da resposta.
Além disso, a deficiência de P também modifica a própria montagem do microbioma.
Castrillo et al. (2017) demonstraram que a resposta vegetal à deficiência de fosfato e a imunidade são integradas na presença da microbiota radicular. Reguladores centrais da resposta ao P participaram também da coordenação da defesa da planta.
Nutrição e microbioma, portanto, não estão em compartimentos separados.
Ferro: a planta modifica a comunidade porque precisa de um nutriente
O Fe oferece um dos exemplos mecanísticos mais elegantes.
Sob limitação férrica, raízes de Arabidopsis liberam cumarinas. Essas moléculas participam diretamente da química de mobilização do Fe, mas também alteram a comunidade microbiana.
Harbort et al. mostraram que a microbiota recrutada nesse contexto contribui para o processo de aquisição de Fe.
A sequência deixa de ser simplesmente: microrganismo → nutriente → planta
e passa a ser: estado nutricional da planta → exsudação → microbioma → disponibilidade do nutriente → resposta da planta.
Micorrizas: ampliar funcionalmente o sistema radicular
Os fungos micorrízicos arbusculares acrescentam outro mecanismo.
As hifas associadas à raiz conseguem explorar volumes e poros do solo que a raiz isoladamente alcança com menor eficiência. Isso é especialmente relevante para elementos pouco móveis, como P, além de micronutrientes e água em determinados ambientes.
Em troca, o fungo recebe carbono e lipídios da planta.
É uma associação biologicamente poderosa, mas novamente dependente do contexto.
Lutz et al. (2023) realizaram inoculação micorrízica em 54 campos de milho na Suíça. A resposta de crescimento variou de -12% a +40% entre áreas. Utilizando principalmente indicadores do microbioma do solo, os autores conseguiram explicar 86% da variação observada na resposta à inoculação.
Esse experimento é particularmente importante porque desloca a discussão de:
“micorriza funciona?”
para:
“em qual solo a inoculação acrescenta uma função útil?”
Se a comunidade nativa já fornece determinado serviço, se o recurso não está limitante ou se o organismo introduzido não consegue competir e colonizar, a resposta pode ser pequena ou inexistente.
Uma síntese útil
A tabela simplifica sistemas muito mais complexos, mas ajuda a deixar claro que não existe um único “mecanismo microbiano de nutrição”.
A rizosfera também é um sistema de comunicação
Até aqui, poderíamos imaginar o microbioma principalmente como um componente da nutrição.
Isso seria insuficiente.
Os microrganismos associados às raízes também podem alterar o crescimento da própria raiz e, com isso, mudar a forma como a planta explora o solo.
Auxinas, citocininas, metabolismo do etileno, compostos voláteis e alterações locais na disponibilidade de nutrientes estão entre os mecanismos capazes de modificar elongação, ramificação e raízes laterais.
O interessante é que esse efeito fecha um ciclo.
A arquitetura radicular determina onde carbono é liberado, quais profundidades são exploradas e quanto solo passa a integrar a rizosfera. A microbiota selecionada nesse ambiente pode modificar novamente o desenvolvimento radicular.
Em milho sob limitação de N, esse circuito ficou particularmente claro: desenvolvimento de raízes laterais, liberação de flavonas e enriquecimento de Oxalobacteraceae estavam funcionalmente conectados.
Assim:
a raiz cria uma rizosfera
→ a rizosfera seleciona uma comunidade
→ a comunidade modifica o funcionamento da raiz
→ a nova arquitetura cria outra rizosfera.
Esse raciocínio também ajuda a entender por que exsudatos não devem ser tratados apenas como “substâncias atrativas”.
Uma mesma molécula pode funcionar como substrato para alguns organismos, sinal para outros e inibidor de determinados competidores.
A comunicação ocorre dos dois lados.
Os microrganismos também liberam metabólitos, sideróforos, enzimas, moléculas voláteis e estruturas reconhecidas pelo sistema imune da planta.
A raiz precisa lidar com um paradoxo: vive permanentemente coberta por microrganismos, mas não pode ativar defesa máxima contra todos eles.
O sistema precisa permitir colonizadores compatíveis e restringir organismos potencialmente prejudiciais.
A endoderme participa dessa coordenação.
Salas-González et al. (2021) demonstraram que genes relacionados ao funcionamento da endoderme influenciam a montagem do microbioma e que a microbiota, por sua vez, interfere na diferenciação endodérmica e na homeostase mineral.
Esse resultado é importante porque aproxima microbioma de anatomia e fisiologia vegetal.
A microbiota não está apenas ao redor da raiz. Ela pode alterar como a própria raiz regula suas barreiras e a composição mineral da planta.
Por que algumas comunidades protegem a planta
Se o microbioma consegue modificar nutrição e desenvolvimento, também consegue alterar a relação entre planta e patógeno.
Mas a proteção não depende apenas da presença de uma bactéria antagonista.
Ela pode emergir de uma comunidade inteira.
Microrganismos competem por espaço e recursos, inclusive Fe e fontes de carbono. Alguns produzem metabólitos antimicrobianos. Outros liberam sideróforos, enzimas como quitinases ou compostos que sensibilizam o sistema imune vegetal.
Esses mecanismos podem operar simultaneamente.
Carrión et al. (2019) estudaram um sistema de beterraba açucareira submetido a um patógeno fúngico. A infecção foi acompanhada pelo enriquecimento de grupos bacterianos específicos e de funções associadas, entre elas genes de quitinases e clusters biossintéticos de metabólitos secundários. A reconstrução experimental de um consórcio bacteriano mostrou que a supressão da doença dependia da função coletiva da comunidade.
Esse tipo de resultado ajuda a entender o conceito de solo supressivo.
Um solo supressivo não precisa estar livre do patógeno.
O patógeno pode estar presente e, mesmo assim, provocar menos doença porque o ambiente biológico limita sua capacidade de se estabelecer, multiplicar ou infectar a planta.
A supressividade também pode ser perdida.
Li et al. (2023) mostraram que a acidificação alterou comunidades bacterianas e reduziu a capacidade natural do microbioma do solo de combater Fusarium.
Essa descoberta tem uma consequência agronômica importante.
Quando o pH muda, não estamos alterando apenas: disponibilidade de nutrientes ou toxicidade de elementos.
Também estamos modificando o habitat de organismos que participam da sanidade vegetal.
Assim, fertilização, calagem e manejo da acidez podem influenciar doenças por diferentes caminhos ao mesmo tempo.
Mais diversidade significa mais produtividade?
É tentador transformar toda essa discussão em uma regra simples:
quanto maior a diversidade microbiana, melhor o solo.
A evidência não sustenta essa conclusão de forma tão direta.
Precisamos separar quatro perguntas.
Quem está presente?
Essa pergunta é respondida principalmente por análises taxonômicas, como 16S para bactérias e ITS para fungos.
O que a comunidade poderia fazer?
Genes funcionais e metagenômica ajudam a estimar potencial.
O que ela está efetivamente fazendo?
Aqui entram transcritos, enzimas, metabólitos e fluxos de nutrientes.
Isso mudou alguma coisa para a cultura?
Só então observamos nutrição, crescimento, doença, eficiência de uso e produtividade. Microbioma da rizosfera, produtividade.
Misturar esses níveis é uma das principais fontes de exagero na interpretação de trabalhos de microbioma.
Uma comunidade pode apresentar maior Shannon e não ter maior atividade de fosfatases.
Pode possuir genes de fixação de N sem que a fixação esteja ocorrendo em magnitude agronomicamente relevante.
Pode ainda ter maior atividade biológica sem produzir maior rendimento porque outro fator passou a limitar a cultura.
Shu et al. (2022), reunindo 219 estudos, observaram que emendas orgânicas aumentaram diversidade, funções microbianas e produtividade em relação à fertilização exclusivamente mineral. Entretanto, as propriedades abióticas do solo e as funções microbianas apresentaram influência mais direta sobre o rendimento que a diversidade isoladamente.
O resultado não significa que diversidade seja irrelevante.
Ela pode contribuir para redundância e estabilidade ecológica.
Mas indica que função é uma ponte mais próxima da produtividade do que o número de táxons por si só.
A própria rizosfera reforça esse argumento: pode apresentar menor riqueza que o solo adjacente e, ainda assim, maior especialização funcional.
A rotação também mostra que bactérias e fungos não respondem necessariamente da mesma forma.
Uma meta-análise publicada em 2025, com 2.406 observações pareadas de 148 estudos, mostrou aumento da diversidade Shannon e riqueza bacterianas sob rotação, enquanto para fungos o efeito mais consistente ocorreu na beta-diversidade, e não na diversidade alfa. As respostas dependeram de pH, N e P disponíveis, clima e identidade funcional das culturas da rotação.
Assim, a pergunta “esse manejo aumenta a diversidade?” é incompleta.
Uma pergunta melhor seria:
quais funções, grupos e interações foram favorecidos e isso alterou algum processo importante para a cultura?
O agricultor não maneja espécies, maneja o habitat
Em uma lavoura, é praticamente impossível controlar diretamente cada população bacteriana ou fúngica.
O agricultor controla algo mais importante: as condições em que essas populações competem.
Carbono disponível, pH, N, P, umidade, oxigênio, estrutura física e intensidade de perturbação atuam como filtros ecológicos.
É por isso que práticas agronômicas modificam o microbioma mesmo quando nenhum inoculante é aplicado.
A adição de matéria orgânica é um exemplo claro. Ela acrescenta simultaneamente carbono, nutrientes e substratos com diferentes velocidades de decomposição. Lori et al. (2017), em uma meta-análise de 56 trabalhos, encontraram valores entre 32% e 84% maiores para diferentes indicadores de biomassa e atividade microbianas em sistemas orgânicos em relação aos sistemas convencionais avaliados. Os autores também mostraram forte influência de rotação, leguminosas, uso da terra e clima.
Isso não permite concluir que todo efeito da matéria orgânica sobre produtividade seja microbiano.
Ao adicionar matéria orgânica também mudamos CTC, retenção de água, estrutura, agregação e oferta de nutrientes.
Essa separação de mecanismos é essencial.
As culturas de cobertura mostram um padrão semelhante.
Kim et al. (2020), em uma meta-análise de 60 estudos, encontraram aumento médio de 27% na abundância microbiana, 22% na atividade e apenas 2,5% na diversidade em relação ao pousio descoberto.
A diferença entre essas magnitudes é reveladora.
Cobertura pode transformar fortemente quanto microrganismo existe e quão ativo ele está sem necessariamente produzir uma explosão equivalente da diversidade.
O carbono contínuo fornecido por raízes vivas, a proteção física da superfície e os resíduos posteriormente adicionados modificam o habitat.
Rotação atua de outro modo.
Além de mudar resíduos, altera continuamente:
- composição dos exsudatos;
- hospedeiros de patógenos;
- associações micorrízicas;
- demanda por nutrientes;
- arquitetura radicular.
A meta-análise global de 2025 deixa claro que a identidade da rotação importa, incluindo transições entre leguminosas e não leguminosas, plantas C3 e C4 e espécies micorrízicas ou não micorrízicas.
A fertilização mineral também precisa ser tratada com mais precisão do que a frase “adubo químico reduz microbiologia”.
Fertilizantes aumentam a disponibilidade de nutrientes e podem elevar o crescimento vegetal, ampliando a entrada de carbono via raízes e resíduos. Por outro lado, doses excessivas, desequilíbrios e acidificação prolongada podem modificar negativamente grupos ou funções específicas.
Os levantamentos utilizados neste artigo sintetizam justamente esse ponto: o efeito depende da fonte, da dose, do pH, da estequiometria e do histórico de manejo, não sendo correto generalizar que fertilizante mineral sempre reduz diversidade.
A água é outro filtro de primeira ordem.
Seca modifica difusão, disponibilidade de substratos, fisiologia das raízes e exsudação. A comunidade responde a essas mudanças.
Isso, porém, não significa que devamos manipular irrigação para “produzir determinada bactéria”.
A evidência ainda é muito mais forte para mostrar que a umidade reorganiza o microbioma do que para definir um regime de irrigação que maximize simultaneamente microbioma e produtividade.
A consequência prática é simples:
manejar microbioma começa, na maior parte das vezes, por manejar o ambiente em que ele precisa funcionar.
Do microbioma à produtividade: onde a evidência é realmente forte
Chegamos à pergunta mais importante para o campo.
Se o microbioma muda, a produtividade muda junto?
Às vezes, sim.
Mas existem várias etapas entre uma alteração microbiana e o rendimento final.
Encontrar uma bactéria mais abundante em uma lavoura produtiva não prova que ela provocou a produtividade.
Pode haver uma terceira variável.
Por exemplo, um solo com melhor pH pode simultaneamente:
- favorecer determinada bactéria;
- melhorar crescimento das raízes;
- aumentar disponibilidade de nutrientes;
- elevar produtividade.
Nesse caso, bactéria e produtividade estão correlacionadas, mas isso ainda não estabelece causalidade.
Os próprios levantamentos que serviram de base para este artigo enfatizam três precauções: riqueza não equivale necessariamente a função, abundância relativa de DNA não corresponde obrigatoriamente a biomassa ou atividade e correlações podem ser geradas por pH, água, fertilidade ou fenologia.
Para demonstrar causalidade, o desenho experimental precisa avançar.
É preciso manipular a comunidade, retirar ou introduzir organismos, reconstruir consórcios, medir funções e verificar se a resposta se repete.
Carrión et al. fizeram isso para supressão de doença. Yu et al. aproximaram essa lógica da nutrição em milho. Harbort et al. mostraram causalidade para Fe. Lutz et al. levaram a pergunta para dezenas de campos agrícolas.
São avanços importantes porque o campo está saindo de:
“quem aparece junto com a planta?”
para:
“qual organismo ou consórcio produz qual função e em qual ambiente?”
Do ponto de vista agronômico, podemos representar a cadeia necessária da seguinte forma:
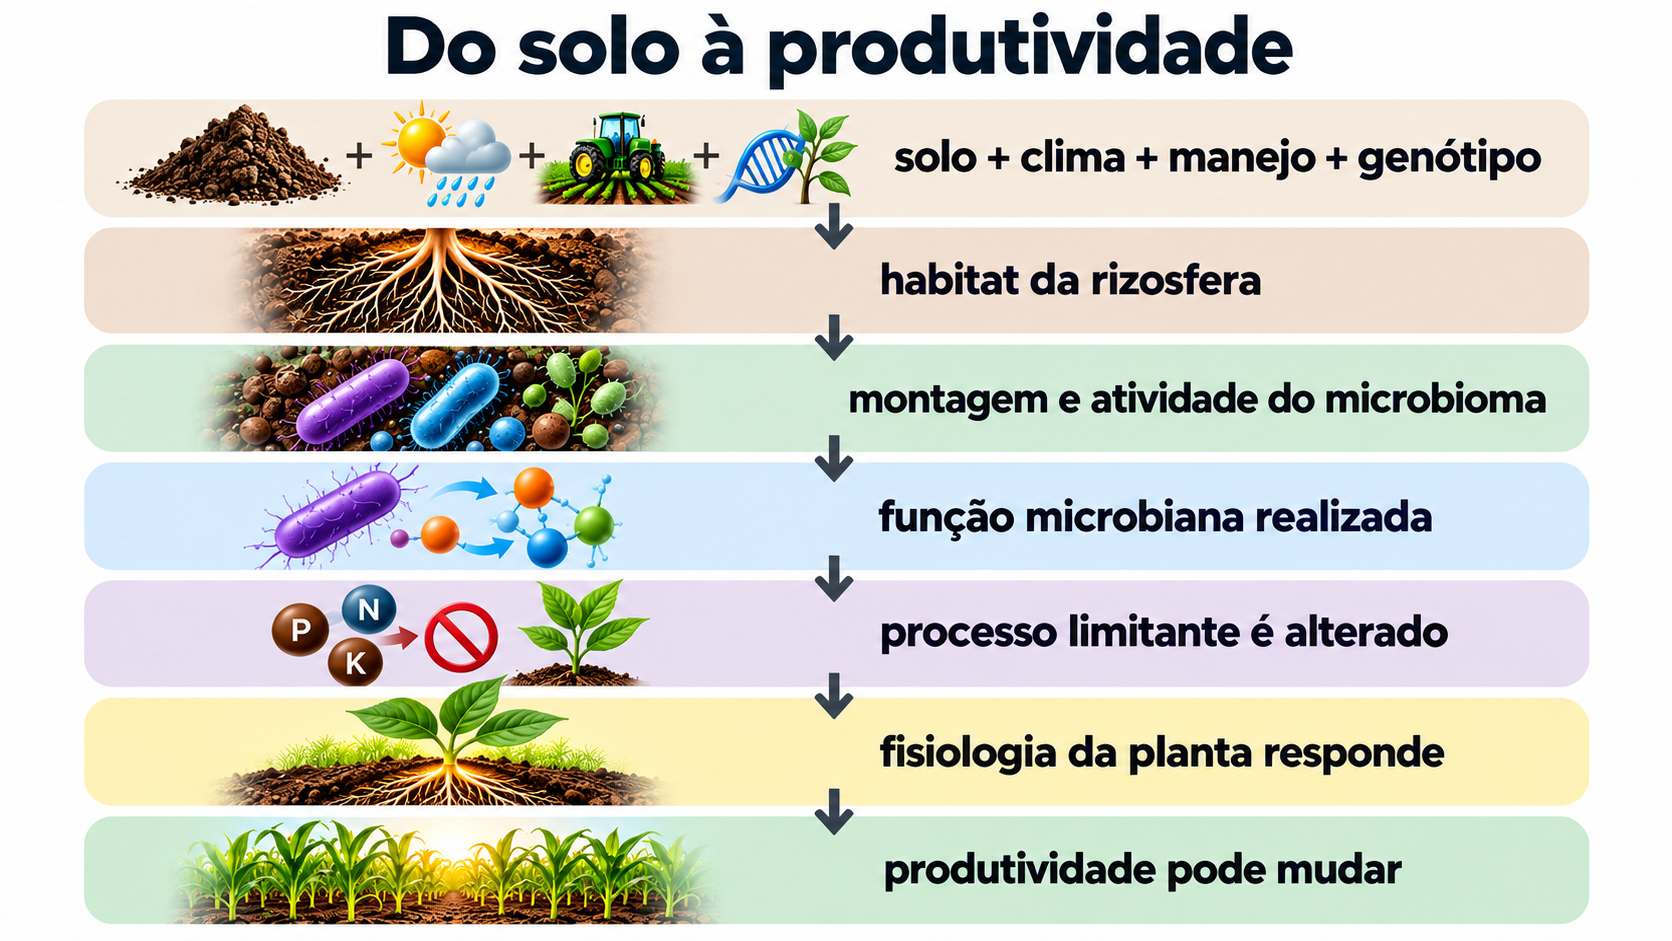
Se o processo alterado não estava limitando a planta, a última etapa pode não ocorrer.
Isso explica boa parte da variabilidade dos inoculantes.
O microrganismo pode sobreviver e realizar sua função, mas a lavoura não responder porque aquele serviço já era fornecido pela comunidade nativa ou porque outro fator passou a ser limitante.
A experiência com micorrizas em 54 campos suíços mostra isso de forma quase didática: o mesmo princípio biológico produziu respostas de crescimento entre -12% e +40%, dependendo do contexto local.
Portanto, talvez a principal evolução na forma de manejar microbioma seja abandonar a pergunta:
Qual microrganismo é bom para a planta?
e substituí-la por três perguntas:
Qual função está limitando o sistema? Essa função pode ser fornecida biologicamente? O solo permite que o organismo responsável por ela se estabeleça e trabalhe?
Esse raciocínio aproxima microbiologia de agronomia.
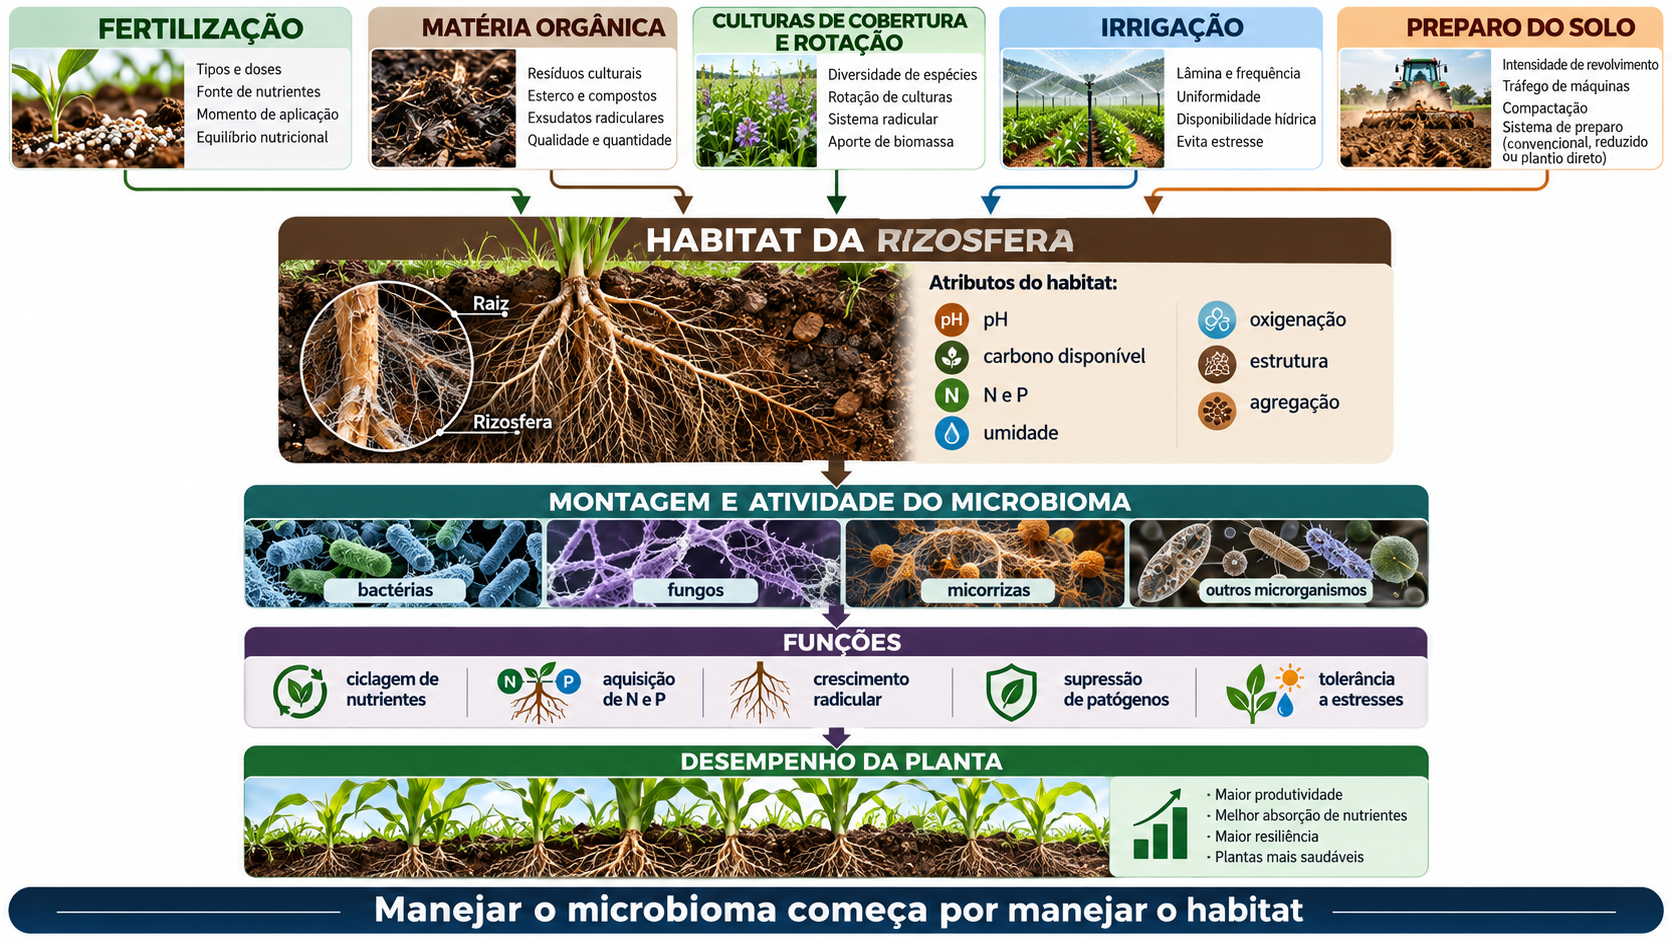
Implicações práticas: o que isso muda no manejo do microbioma?
O primeiro passo é parar de tratar microbioma apenas como sinônimo de inoculante.
Inoculação é uma estratégia possível.
O microbioma nativo, porém, já está respondendo todos os dias ao tipo de carbono que chega ao solo, ao pH, à irrigação, à fertilização, à rotação e à própria cultura implantada.
Na prática, um diagnóstico biologicamente coerente deveria começar pela limitação.
Se o problema é N em uma leguminosa, existe uma rota biológica consolidada.
Se o problema é baixa aquisição de P, é preciso separar teor, forma química, difusão, sistema radicular e contribuição potencial de micorrizas ou transformações microbianas.
Se há doença de solo, o objetivo não deveria ser simplesmente “aumentar diversidade”, mas entender se o manejo está preservando ou eliminando funções de supressividade.
Se um inoculante é proposto, algumas perguntas passam a ser essenciais: ele realiza qual função, essa função está faltando, consegue colonizar aquele ambiente e existe evidência regional de resposta?
Esse raciocínio também muda a forma de medir.
Um índice de diversidade isolado tem valor limitado.
O diagnóstico melhora quando taxonomia é colocada ao lado de:
- pH e fertilidade;
- matéria orgânica e carbono disponível;
- atividade enzimática;
- biomassa microbiana;
- crescimento e arquitetura radicular;
- estado nutricional;
- incidência de doenças;
- produtividade.
Não precisamos medir todos esses componentes em todas as fazendas.
Mas precisamos manter a lógica causal.
O objetivo não é ter um solo biologicamente “cheio”. É ter um sistema em que funções biológicas úteis consigam ser expressas quando a cultura precisa delas.
Conclusão
O microbioma interfere na produtividade porque modifica o ambiente funcional da raiz.
Ele participa da transformação de nutrientes, da fixação de N, da aquisição de P e Fe, da expansão do volume explorado pelas micorrizas, da arquitetura radicular e da defesa contra patógenos.
Mas essas funções não são propriedades fixas de uma lista de organismos.
Elas emergem da interação entre comunidade, planta e ambiente.
A raiz participa dessa montagem por meio de seus exsudatos, do estado nutricional, do genótipo, da fenologia e da própria arquitetura.
O manejo participa ao controlar carbono, pH, água, nutrientes, estrutura e intensidade de perturbação.
Por isso, duas lavouras podem receber o mesmo inoculante e responder de forma completamente diferente.
Também é por isso que um solo com maior diversidade não é necessariamente mais produtivo, embora diversidade possa contribuir para estabilidade e redundância.
A ligação realmente importante passa por função.
Quem está presente é uma pergunta.
O que poderia fazer é outra.
O que está fazendo é mais importante.
E se isso alterou produtividade é a pergunta agronômica final.
Talvez a melhor maneira de sintetizar o tema seja esta:
Microbioma não deve ser manejado como uma coleção de microrganismos benéficos. Deve ser entendido como uma rede de funções cuja expressão depende da planta e do habitat que construímos no solo.
Em cinco pontos
- A planta participa ativamente da seleção do microbioma, principalmente por meio de exsudatos, genótipo, fenologia e estado nutricional.
- Microrganismos interferem na nutrição por mecanismos diferentes, incluindo fixação de N, transformação de P, aquisição de Fe e micorrizas.
- Comunidades microbianas também podem proteger a planta, e solos supressivos mostram que essa proteção pode emergir da comunidade inteira.
- Diversidade taxonômica não é sinônimo de função ou produtividade. Propriedades do solo e funções microbianas estão mais diretamente ligadas ao rendimento.
- O manejo do microbioma começa pelo habitat, principalmente carbono, pH, água, nutrientes, estrutura, cobertura e rotação.
Perguntas frequentes
Quanto maior a diversidade microbiana, melhor o solo?
Não necessariamente. Diversidade pode aumentar redundância e estabilidade, mas a produtividade depende das funções que estão sendo realizadas e das condições físico-químicas que permitem sua expressão.
Microrganismos podem substituir fertilizantes?
Em funções específicas, podem reduzir fortemente a necessidade de determinados insumos. A fixação biológica de N em leguminosas é o exemplo mais consolidado. Isso não significa que todas as necessidades nutricionais possam ser substituídas por inoculação.
Micorriza sempre aumenta produtividade?
Não. A resposta depende da comunidade nativa, do recurso limitante, da fertilidade, do solo e da colonização. Em 54 campos de milho, a resposta à inoculação variou de -12% a +40%.
Fertilização mineral prejudica o microbioma?
Não existe uma regra universal. Dose, fonte, pH, balanço nutricional e histórico de aplicação determinam a resposta.
Cultura de cobertura aumenta atividade microbiana?
Em média, sim. Uma meta-análise encontrou aumento de 27% na abundância microbiana e 22% na atividade, enquanto a diversidade aumentou apenas 2,5%, mostrando que esses indicadores não respondem na mesma intensidade.
Como saber se um inoculante tem chance de funcionar?
A pergunta central é se ele fornece uma função que está limitando a cultura, consegue colonizar o ambiente e permanece funcional diante da microbiota nativa e das condições do solo.
Referências
Carrión, V. J. et al. 2019. Pathogen-induced activation of disease-suppressive functions in the endophytic root microbiome. Science, 366, 606-612. DOI: 10.1126/science.aaw9285.
Castrillo, G. et al. 2017. Root microbiota drive direct integration of phosphate stress and immunity. Nature, 543, 513-518. DOI: 10.1038/nature21417.
Harbort, C. J. et al. 2020. Root-secreted coumarins and the microbiota interact to improve iron nutrition in Arabidopsis. Cell Host & Microbe, 28, 825-837.e6. DOI: 10.1016/j.chom.2020.09.006.
Kim, N. et al. 2020. Do cover crops benefit soil microbiome? A meta-analysis of current research. Soil Biology and Biochemistry, 142, 107701. DOI: 10.1016/j.soilbio.2019.107701.
Li, X. et al. 2023. Acidification suppresses the natural capacity of soil microbiome to fight pathogenic Fusarium infections. Nature Communications, 14, 5090. DOI: 10.1038/s41467-023-40810-z.
Lori, M.; Symnaczik, S.; Mäder, P.; De Deyn, G.; Gattinger, A. 2017. Organic farming enhances soil microbial abundance and activity: a meta-analysis and meta-regression. PLOS ONE, 12, e0180442. DOI: 10.1371/journal.pone.0180442.
Lutz, S. et al. 2023. Soil microbiome indicators can predict crop growth response to large-scale inoculation with arbuscular mycorrhizal fungi. Nature Microbiology, 8, 2277-2289. DOI: 10.1038/s41564-023-01520-w.
Salas-González, I. et al. 2021. Coordination between microbiota and root endodermis supports plant mineral nutrient homeostasis. Science, 371, eabd0695. DOI: 10.1126/science.abd0695.
Shu, X. et al. 2022. Organic amendments enhance soil microbial diversity, microbial functionality and crop yields: a meta-analysis. Science of the Total Environment, 829, 154627. DOI: 10.1016/j.scitotenv.2022.154627.
Trivedi, P.; Leach, J. E.; Tringe, S. G.; Sa, T.; Singh, B. K. 2020. Plant-microbiome interactions: from community assembly to plant health. Nature Reviews Microbiology, 18, 607-621. DOI: 10.1038/s41579-020-0412-1.
Yu, P. et al. 2021. Plant flavones enrich rhizosphere Oxalobacteraceae to improve maize performance under nitrogen deprivation. Nature Plants, 7, 481-499. DOI: 10.1038/s41477-021-00897-y.
Zhalnina, K. et al. 2018. Dynamic root exudate chemistry and microbial substrate preferences drive patterns in rhizosphere microbial community assembly. Nature Microbiology, 3, 470-480. DOI: 10.1038/s41564-018-0129-3.
Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.