Neste artigo41 tópicos

A fotossíntese precisa de luz, mas existe um ponto em que captar mais fótons passa a criar um problema: a planta precisa dissipar energia, proteger PSII e PSI, controlar EROs e continuar transformando luz em carbono

Existe um ponto em que mais luz deixa de significar mais fotossíntese.

Em baixa irradiância, aumentar a quantidade de fótons que chega à folha normalmente aumenta o transporte de elétrons e a assimilação de CO₂. A planta ainda possui capacidade bioquímica para utilizar a energia adicional.

Essa relação, porém, não cresce indefinidamente.

À medida que a irradiância aumenta, outras etapas passam a limitar o processo: disponibilidade de CO₂, atividade da Rubisco, regeneração de RuBP, transporte de elétrons, uso de ATP e NADPH e, finalmente, capacidade dos órgãos dreno de consumir o carbono produzido.

A folha continua absorvendo energia, mas já não consegue convertê-la proporcionalmente em carbono novo.

É aí que a luz muda de papel.

De recurso, pode passar a ser uma carga que precisa ser administrada.

E o mais importante é que esse limite não depende apenas da intensidade luminosa. Uma folha bem hidratada, com estômatos abertos, temperatura adequada e forte demanda por carbono pode utilizar uma irradiância que, algumas horas depois, se torna excessiva se o DPV sobe, o estômato fecha, a temperatura foliar aumenta ou uma deficiência nutricional restringe a fotossíntese.

Por isso, estresse luminoso é, antes de tudo, um problema de balanço de energia.

A planta precisa equilibrar:

energia absorvida

com

capacidade de usar essa energia na fotoquímica e no metabolismo.

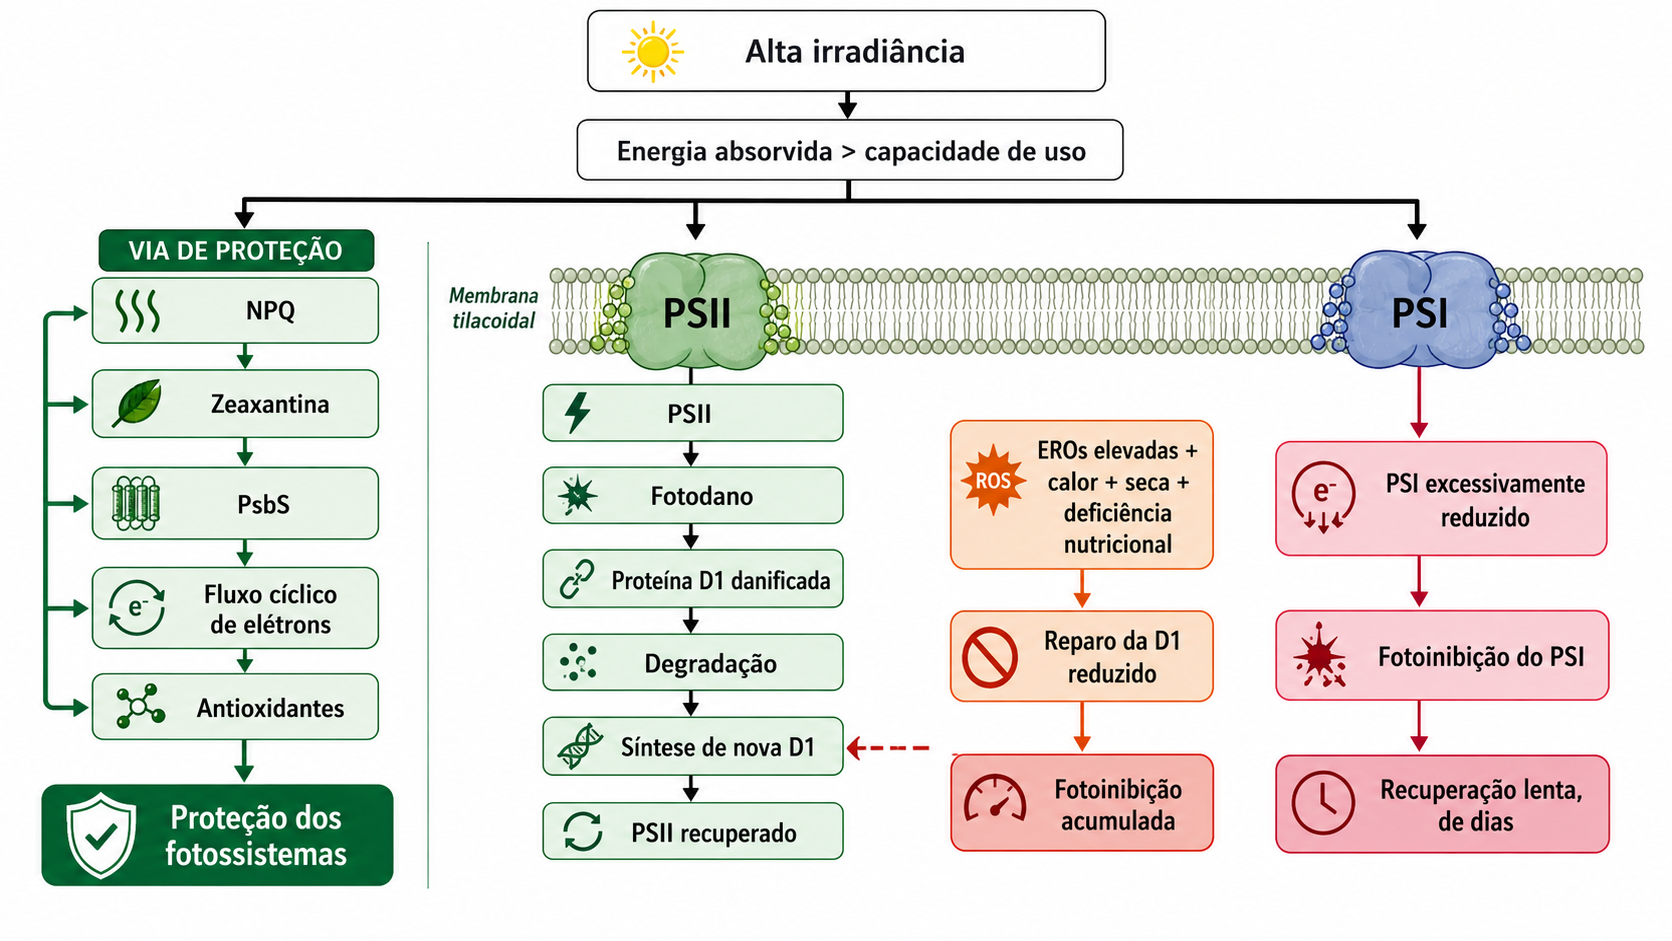
Quando a entrada excede a capacidade de uso, mecanismos de fotoproteção entram em ação. Parte da energia é dissipada como calor. O fluxo de elétrons é regulado. Antioxidantes controlam espécies reativas de oxigênio (EROs). Complexos danificados precisam ser reparados.

Se essa proteção acompanha a carga, a planta atravessa o período de alta luz sem grande prejuízo.

Se deixa de acompanhar, aparece fotoinibição.

E, se o desequilíbrio persiste, fotodano.

A pergunta agronomicamente importante não é quanta luz chega à lavoura, mas quanto dessa luz a planta consegue transformar em carbono naquele momento.

Neste artigo, você vai entender

  • por que a curva luz-fotossíntese possui um ponto de saturação;
  • por que “excesso de luz” depende da capacidade metabólica da planta;
  • como a energia absorvida é dividida entre fotoquímica, dissipação térmica e outras perdas;
  • o que realmente significa NPQ;
  • por que proteger demais também pode custar carbono;
  • como ocorre a fotoinibição do PSII e o reparo da proteína D1;
  • por que a fotoinibição do PSI é menos frequente, mas potencialmente mais grave;
  • qual é o papel das EROs na fotoproteção e no dano;
  • como Mg, K, N, Mn, Fe e outros nutrientes entram nessa história;
  • por que luz flutuante é diferente de luz constante;
  • o que arroz, soja, café, milho, cana-de-açúcar e manga ensinam sobre eficiência fotossintética;
  • como usar fluorescência, temperatura foliar e trocas gasosas para separar fotoproteção de fotodano;
  • o que tudo isso muda no manejo da lavoura.

Por que a fotossíntese deixa de responder linearmente à luz

magine uma folha saindo da sombra para o sol.

Nos primeiros aumentos de irradiância, a assimilação de CO₂ cresce rapidamente.

Existe energia para excitar as clorofilas, transportar elétrons, produzir ATP e NADPH e alimentar o ciclo de Calvin.

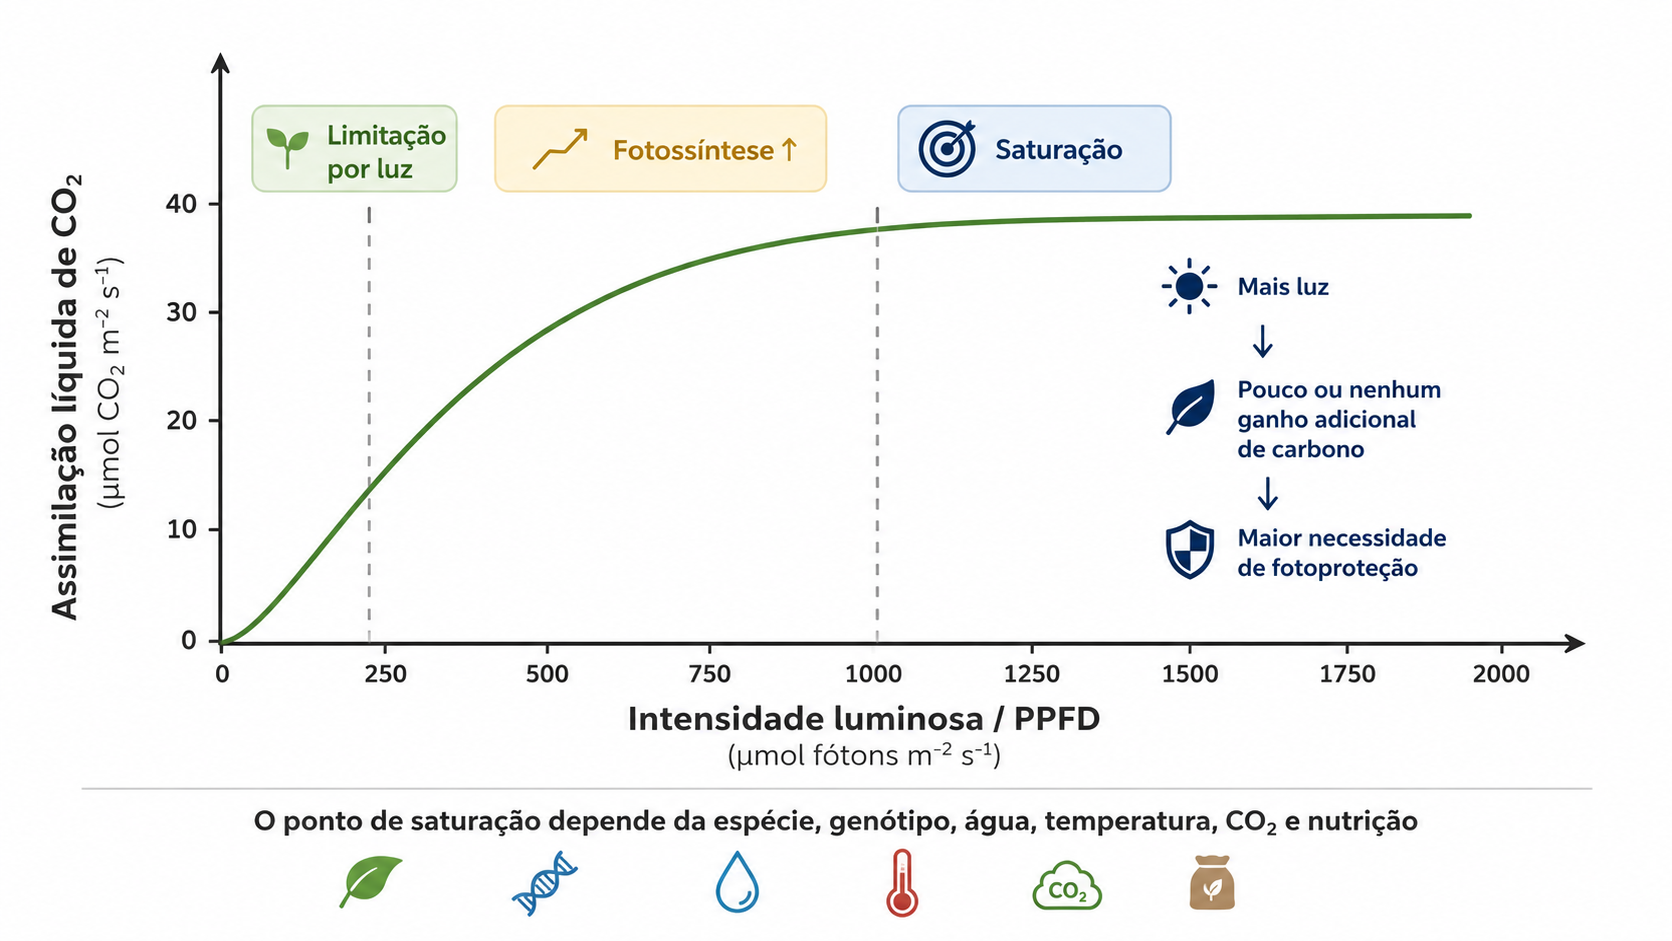
A curva típica possui três regiões.

Baixa luz

A fotossíntese está fortemente limitada pela disponibilidade de fótons.

Mais luz gera mais assimilação.

Região de resposta progressivamente menor

A planta continua aumentando a assimilação, mas cada unidade adicional de luz produz um ganho menor.

Outros processos começam a limitar o sistema.

Saturação

Chega um momento em que aumentar a irradiância praticamente não aumenta a assimilação de CO₂.

Depois desse ponto, a folha recebe energia em uma velocidade maior do que consegue utilizá-la metabolicamente.

O ponto de saturação não é uma constante fixa de uma espécie.

Ele muda conforme:

  • folha de sol ou sombra;
  • idade da folha;
  • temperatura;
  • CO₂;
  • disponibilidade hídrica;
  • nutrição;
  • genótipo;
  • estádio fenológico.

É justamente por isso que tabelas dizendo que determinada cultura “satura em X µmol m⁻² s⁻¹” devem ser interpretadas como aproximações experimentais, e não como limites universais.

Figura 1. A assimilação de CO₂ cresce rapidamente em baixa irradiância, depois se aproxima da saturação. A partir desse ponto, aumentos adicionais de luz elevam a energia que precisa ser dissipada ou redirecionada, sem ganho proporcional de carbono.

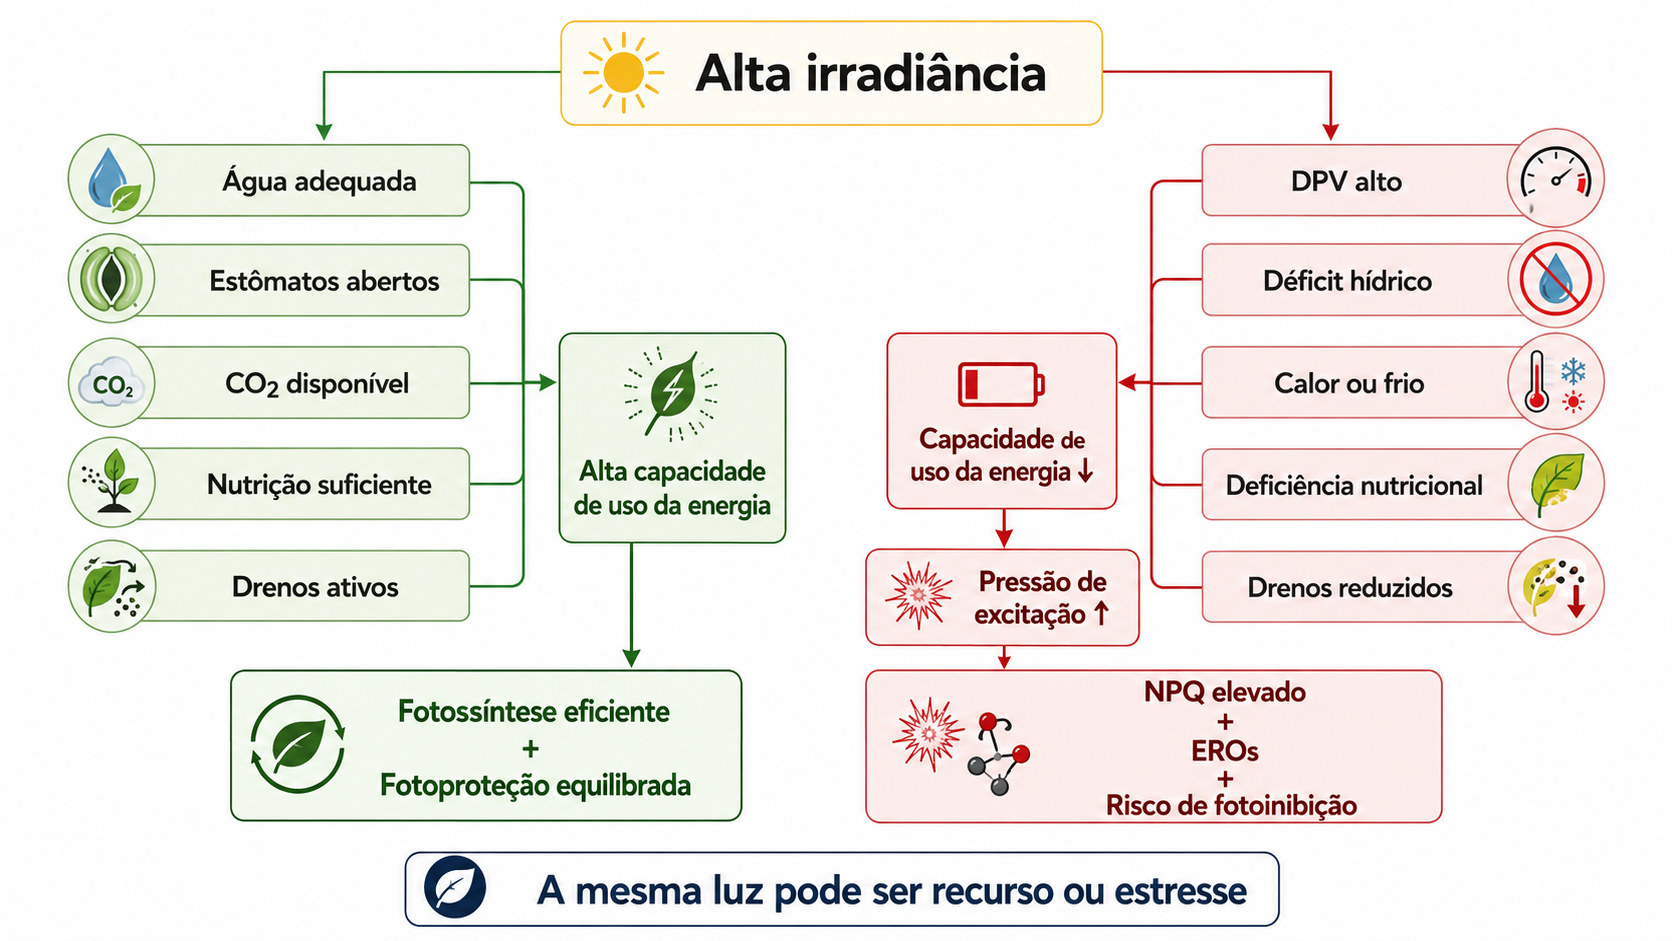
Excesso de luz é relativo à capacidade de uso

Esse é provavelmente o conceito mais importante deste artigo.

Uma irradiância não é excessiva por si só.

Ela se torna excessiva quando:

energia absorvida > capacidade de utilização

Essa capacidade de utilização depende de todos os processos que funcionam depois da captura de luz.

Se o estômato fecha por alto DPV, menos CO₂ entra.

Se a folha aquece demais, reações bioquímicas perdem eficiência.

Se há deficiência de Mg, K ou N, a capacidade fotossintética pode cair.

Se os frutos ou grãos reduzem sua atividade como drenos, o carbono deixa de ser consumido na mesma velocidade.

A luz incidente pode ser exatamente a mesma.

Mas o sistema passa a ter menos lugares para utilizar elétrons, ATP e NADPH.

Kramer e colaboradores descrevem essa necessidade de ajustar continuamente a produção de energia nas reações luminosas à demanda do metabolismo. A fotossíntese só permanece eficiente quando essa oferta e essa demanda continuam coordenadas.

Podemos pensar em duas plantas recebendo 1.800 µmol de fótons m⁻² s⁻¹.

Na primeira:

água adequada + estômatos abertos + CO₂ entrando + drenos ativos

Na segunda:

alto DPV + estômatos parcialmente fechados + baixo CO₂ + alta temperatura

A irradiância é igual.

A pressão de excitação sobre o aparato fotossintético, não.

O excesso de luz começa quando a planta deixa de ter capacidade suficiente para utilizar a energia absorvida.

Para onde vai a energia que não vira fotoquímica?

A energia de excitação capturada pela clorofila não possui apenas um destino.

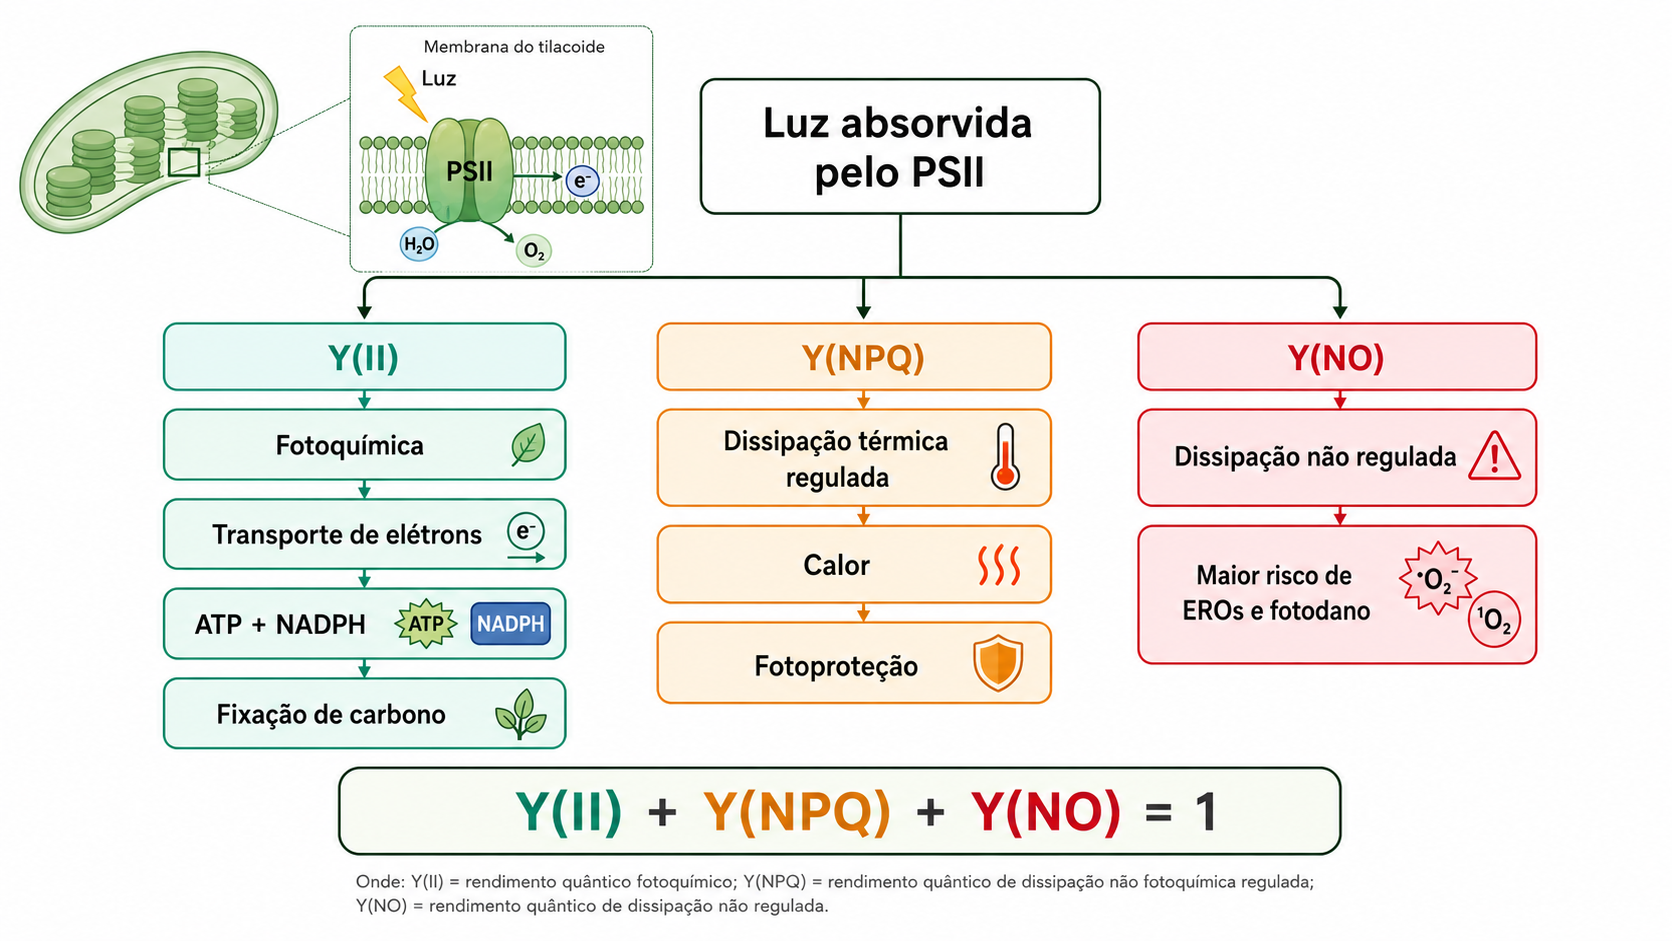
De forma simplificada, podemos separá-la em três grandes caminhos no PSII:

Fotoquímica

A energia é utilizada na separação de cargas e contribui para o transporte de elétrons.

Na fluorescência de clorofila, isso é representado pelo rendimento Y(II) ou ΦPSII.

Dissipação regulada

A planta converte deliberadamente parte da energia em calor.

É a fração Y(NPQ).

Essa é uma resposta protetora.

Dissipação não regulada

Existe também uma parcela que não está sendo utilizada fotoquimicamente nem dissipada de maneira regulada.

É representada por Y(NO).

Quando Y(NO) cresce, aumenta a indicação de que a capacidade regulatória está sendo pressionada e de que centros de reação podem estar excessivamente reduzidos. Essa partição energética é especialmente útil porque uma queda de Y(II) isoladamente não diz se a planta está protegida ou entrando em dano.

A leitura correta não é:

Y(II) caiu = planta danificada.


Pode ser:


Y(II) ↓ + Y(NPQ) ↑


ou seja:


menos energia em fotoquímica, mais energia sendo dissipada de forma controlada.


Isso pode representar uma planta funcionando exatamente como deveria.

NPQ: gastar energia para proteger a fotossíntese

NPQ significa quenching não fotoquímico.

Na prática, é um conjunto de mecanismos que permite à planta converter energia de excitação em calor antes que essa energia cause problemas.

O componente mais rápido e importante sob mudanças de luz é o qE.

Quando o transporte de elétrons aumenta, prótons se acumulam no lúmen do tilacoide.

O pH luminal cai.

Isso ativa dois componentes fundamentais:

PsbS e  ciclo das xantofilas.

A violaxantina é convertida em anteraxantina e zeaxantina, enquanto PsbS responde à acidificação.

O aparato coletor de luz muda de estado e passa a dissipar mais energia como calor.

Em segundos ou minutos, a planta consegue mudar de:

capturar para usar para capturar e dissipar.


Isso é fotoproteção.


E não desperdício.


O desperdício real seria manter toda a antena excitada quando a fotoquímica já não consegue utilizar aquela energia.

Figura 2. A energia absorvida pode seguir para fotoquímica, ser dissipada de forma regulada por NPQ ou seguir por perdas não reguladas. NPQ elevado pode ser sinal de fotoproteção eficiente, enquanto aumento de Y(NO) indica menor controle sobre o excesso de energia.

Quando a própria proteção começa a custar carbono

Aqui aparece um paradoxo interessante.

NPQ é necessário quando a luz aumenta.

Mas precisa diminuir quando a luz volta a cair.

No campo isso acontece o tempo todo.

Uma folha recebe sol direto.

Depois outra folha a sombreia.

Uma nuvem passa.

O vento movimenta o dossel.

Em poucos minutos, a irradiância pode variar de algumas centenas para mais de 1.500 ou 2.000 µmol m⁻² s⁻¹ e retornar.

O problema é que a fotoproteção nem sempre relaxa com a mesma velocidade em que a luz diminui.

Durante alguns minutos, a folha pode continuar dissipando energia como calor mesmo quando já poderia voltar a utilizá-la na fotoquímica.

Kromdijk et al. (2016) aceleraram geneticamente o relaxamento de NPQ em tabaco, manipulando PsbS e enzimas do ciclo das xantofilas. Em condições de luz flutuante, as plantas apresentaram maior assimilação e aproximadamente 15% mais biomassa.

O experimento foi importante porque mostrou algo pouco intuitivo:

a planta não perde carbono apenas quando não consegue se proteger da luz. Também pode perder carbono quando demora demais para desligar a proteção.

De Souza et al. (2022) aplicaram estratégia semelhante em soja e relataram aumento de rendimento de sementes de até 33% em eventos transformados. O resultado gerou posteriormente uma contestação formal quanto ao desenho experimental e à força da evidência para o ganho de produtividade, seguida de resposta dos autores. Portanto, a prova de que a cinética do NPQ afeta a assimilação é sólida, mas a magnitude do ganho de rendimento em soja continua sendo discutida.

Esse cuidado é importante porque não existe fundamento para extrapolar esse resultado para alegações de que um produto foliar qualquer “acelera NPQ” sem medição direta.

PSII: dano, reparo e a proteína D1

O PSII é particularmente suscetível porque precisa gerar um oxidante extremamente forte para retirar elétrons da água.

A proteína D1, localizada no centro de reação do PSII, sofre turnover constante.

Quando unidades de PSII são danificadas, D1 é degradada e substituída.

Por isso, a fotoinibição observada em uma folha não depende apenas de quanto dano ocorre.

Depende de:

Fotoinibição líquida = dano – capacidade de reparo 

Esse raciocínio muda bastante a interpretação de campo.

Uma planta pode sofrer fotodano durante o meio-dia e recuperar-se rapidamente.

Outra pode receber a mesma radiação, mas ter o sistema de reparo prejudicado por calor, seca, salinidade ou deficiência nutricional.

Nesse segundo caso, o dano começa a se acumular.

Nishiyama, Allakhverdiev e Murata mostraram que as EROs podem prejudicar fortemente o reparo do PSII ao inibir a síntese de novas proteínas, incluindo D1, durante o processo de tradução.

O mecanismo exato do dano inicial ao PSII continua sendo discutido, incluindo hipóteses relacionadas ao complexo de evolução do oxigênio e à recombinação de cargas.

Para a agronomia, porém, o ponto central permanece:

o PSII tolera melhor a alta luz quando a planta consegue reparar rapidamente aquilo que inevitavelmente é danificado.

PSI: menos vulnerável, mas muito mais lento para recuperar

Durante muito tempo, praticamente toda a discussão de fotoinibição ficou concentrada no PSII.

Hoje sabemos que o PSI também pode ser fotoinibido.

Isso ocorre especialmente em situações em que os aceptores de elétrons do lado do PSI permanecem excessivamente reduzidos.

Dois ambientes são particularmente importantes:

  • frio combinado com luz;
  • luz intensamente flutuante.

Sonoike (2025) revisou mais de três décadas de evidência mostrando que a fotoinibição do PSI não é apenas um fenômeno raro de laboratório. Ela pode ocorrer em diferentes condições quando os mecanismos de proteção falham.

E existe uma diferença crítica.

O PSII possui um ciclo de reparo relativamente rápido.

A recuperação do PSI pode levar dias.

Por isso, a planta protege PSI de maneira muito rigorosa.

Entre os mecanismos envolvidos estão:

  • controle do fluxo de elétrons no citocromo b6f;
  • manutenção de P700 oxidado;
  • fluxo cíclico de elétrons;
  • mecanismos associados a PGR5;
  • regulação do gradiente de prótons.

A importância de PGR5 aparece de forma particularmente clara sob luz flutuante. Plantas deficientes nessa regulação podem funcionar relativamente bem sob luz constante e apresentar forte fotoinibição de PSI quando submetidas a mudanças rápidas de intensidade.

EROs: entre sinalização e dano oxidativo

Espécies reativas de oxigênio não são apenas subprodutos tóxicos da fotossíntese.

Elas também são sinais.

Superóxido, peróxido de hidrogênio, oxigênio singleto e outras EROs participam de redes que informam à célula que o estado redox e energético mudou.

O problema surge quando sua formação ultrapassa a capacidade de controle.

Nesse ponto podem ocorrer:

  • peroxidação de lipídios;
  • oxidação de proteínas;
  • perda de pigmentos;
  • inibição do reparo de PSII;
  • danos ao aparato de transporte de elétrons.

O sistema antioxidante inclui SOD, APX, CAT, peroxirredoxinas e moléculas como ascorbato, glutationa, carotenoides e tocoferóis.

O ciclo ascorbato-glutationa é um dos principais componentes dessa rede e está profundamente integrado à sinalização redox, e não apenas à “remoção de EROs”. Foyer e Kunert (2024) destacam justamente essa função dupla entre detoxificação, estado energético e sinalização celular.

Portanto:

antioxidante alto ≠ automaticamente planta tolerante.

A pergunta continua sendo:

o sistema conseguiu preservar fotossíntese, membranas, crescimento e reprodução?

Nutrição mineral também determina tolerância à alta luz

Esse ponto tem aplicação direta no manejo agrícola.

A alta luz se torna muito mais perigosa quando o aparato fotossintético está limitado por deficiência nutricional.

O magnésio fornece um bom exemplo.

Além de integrar a molécula de clorofila, Mg participa de enzimas e da exportação de sacarose pelo floema.

Cakmak e Kirkby (2008) mostraram que uma das respostas precoces à deficiência de Mg é a redução da exportação de sacarose das folhas fonte.

Açúcares se acumulam na folha.

A fixação de CO₂ diminui.

A cadeia de transporte de elétrons passa a ter menos drenos para utilizar a energia absorvida.

O risco fotooxidativo aumenta, especialmente sob alta irradiância.

Em arroz, reduzir a intensidade luminosa de 1.000 para 650 ou 350 µmol m⁻² s⁻¹ diminuiu a formação de H₂O₂ e os sinais associados à degradação de clorofila em plantas deficientes em Mg, mostrando diretamente a interação deficiência de Mg × alta luz.

Potássio produz uma história semelhante por outros mecanismos.

Deficiência de K reduz fixação de CO₂, prejudica utilização e transporte de fotoassimilados e favorece formação de EROs. Cakmak (2005) mostrou que plantas deficientes em K se tornam particularmente sensíveis à alta irradiância.

Isso não significa:

“aplicar mais Mg ou K aumenta a fotoproteção indefinidamente”.

Significa:

corrigir deficiência remove uma limitação que estava diminuindo a capacidade da planta de utilizar a energia luminosa.

Suficiência é o objetivo.

Não excesso.

O que as principais culturas mostram

Arroz: responder rápido à mudança de luz também é eficiência

Acevedo-Siaca e colaboradores compararam a cultivar de alto rendimento Takanari com Koshihikari sob condições de luz flutuante.

Takanari fixou mais carbono durante os primeiros minutos após aumentos bruscos de irradiância e apresentou maior desempenho fotossintético diário, principalmente sob menor disponibilidade de N.

No campo, o transporte de elétrons integrado ao longo do dia foi de aproximadamente 3,44 mol m⁻² dia⁻¹ em Takanari contra 2,86 mol m⁻² dia⁻¹ em Koshihikari.

O dado mostra por que eficiência fotossintética não deve ser medida apenas quando a folha já atingiu estado estacionário.

Soja: proteger rápido e relaxar rápido

O experimento de De Souza et al. (2022) tornou a soja um caso emblemático da discussão sobre cinética de NPQ.

Independentemente da controvérsia sobre a magnitude do aumento de rendimento, o trabalho mostrou que modificar a velocidade de relaxamento da fotoproteção altera a eficiência fotossintética durante mudanças de luz.

Para melhoramento, o alvo ideal não é simplesmente: NPQ alto.

É: NPQ suficientemente rápido para proteger + suficientemente rápido para relaxar.

Café: a depressão do meio-dia não é apenas “sol forte”

Em condições tropicais de campo, cafeeiros podem apresentar forte redução da fotossíntese no período de maior irradiância.

Em Coffea canephora, estudos diurnos mostraram queda da assimilação e da condutância estomática durante o período de maior PPFD, temperatura foliar e DPV.

Isso mostra por que é inadequado atribuir a depressão do meio-dia exclusivamente ao “excesso de luz”.

O problema real pode ser: 

radiação alta + DPV alto + fechamento estomático + menor CO₂ + maior pressão de excitação.

Ou seja, a luz se torna excessiva porque a capacidade de usá-la diminuiu.

Milho e cana-de-açúcar: C4 não significa imunidade à fotoinibição

Milho e cana apresentam alta capacidade fotossintética sob radiação intensa.

Ainda assim, temperaturas baixas combinadas com luz podem criar forte desequilíbrio entre captura de energia e metabolismo.

Uma revisão sobre melhoria da fotossíntese C4 destaca que milho é particularmente suscetível à fotoinibição por frio entre as culturas temperadas e que cana-de-açúcar apresenta sensibilidade ainda maior ao resfriamento, especialmente quando a luz continua presente.

Mais uma vez: não é apenas a quantidade de luz.


É a relação entre a luz e a velocidade com que o metabolismo consegue utilizá-la.

Manga: às vezes o manejo precisa reduzir a carga de radiação

Em frutíferas, o problema inclui não apenas a folha, mas também a superfície do fruto.

Hamdy et al. (2022) trabalharam com manga ‘Keitt’ e aplicações de caulim a 2%, 4% e 6% durante duas safras.

No tratamento de 6%, a porcentagem de frutos com queimadura solar caiu aproximadamente 77,6% e 76,3% nos dois anos, respectivamente. O tratamento também esteve associado a maior retenção de pigmentos e melhor desempenho produtivo nas condições do experimento.

Em outro experimento de campo, Bellitti et al. (2025) observaram que caulim reduziu em aproximadamente 68% as chances de ocorrência de queimadura solar em manga no ambiente mediterrâneo estudado.

Isso não transforma 6% em uma dose universal para manga.

Formulação, concentração do produto comercial, cobertura, cultivar e ambiente precisam ser considerados.

Mas demonstra um princípio aplicável a regiões de alta radiação:

quando a carga energética ultrapassa repetidamente a capacidade de proteção, refletir parte dessa energia pode ser mais efetivo que tentar estimular bioquimicamente uma planta já sobrecarregada.

Como medir estresse luminoso sem confundir proteção com dano

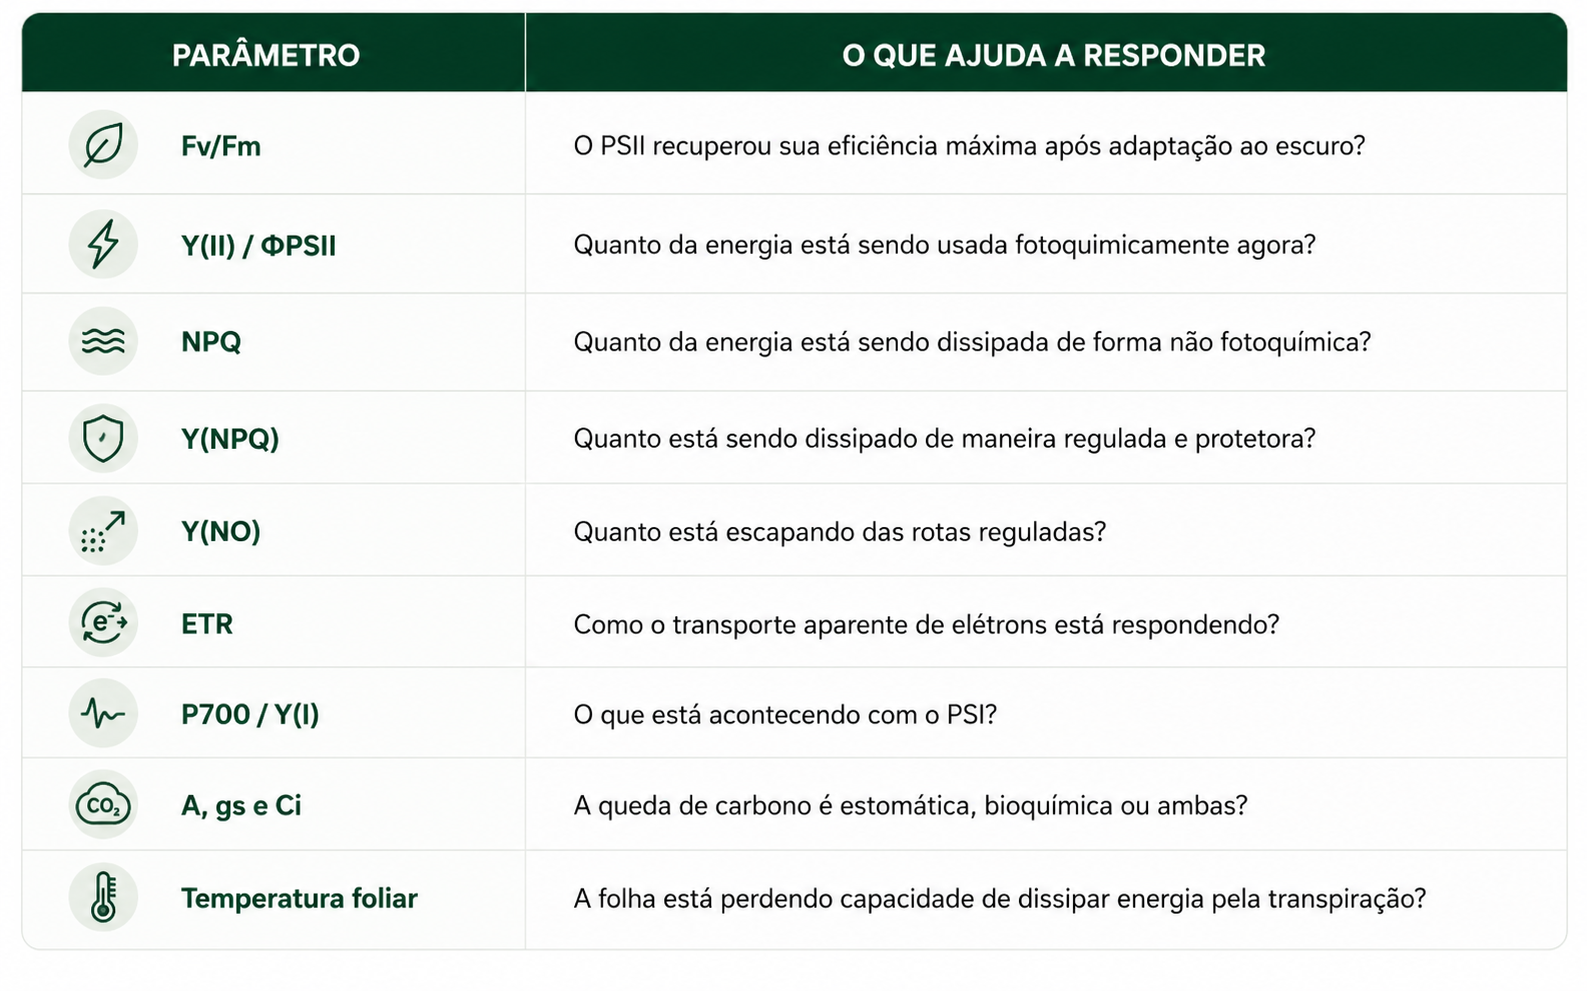
A fluorescência da clorofila é uma das ferramentas mais úteis, mas os parâmetros precisam ser interpretados em conjunto.

Em muitas folhas saudáveis, Fv/Fm adaptado ao escuro fica próximo de 0,80 a 0,83.

Mas esse número não deve ser utilizado como um diagnóstico binário.

Uma redução durante o meio-dia que desaparece após horas de recuperação pode refletir fotoproteção e aclimatação.

Uma redução que permanece após recuperação prolongada é mais compatível com dano acumulado.

O contexto e a reversibilidade são tão importantes quanto o número.

Figura 3. Durante alta irradiância, NPQ, fluxo cíclico de elétrons e antioxidantes reduzem a pressão sobre os fotossistemas. O PSII também depende do ciclo de reparo de D1. O problema surge quando o dano supera a proteção e o reparo, ou quando o PSI permanece excessivamente reduzido.

Implicações práticas: o que isso muda no manejo da luz e da fotossíntese?

A primeira mudança é abandonar a ideia de que alta radiação deve ser tratada isoladamente.

Em campo, uma irradiância elevada se torna muito mais perigosa quando coincide com:

  • alto DPV;
  • falta de água;
  • baixa condutância estomática;
  • calor;
  • frio;
  • deficiência nutricional;
  • forte desfolha;
  • exposição repentina de frutos ou folhas antes sombreados.

1. Identifique primeiro o que reduziu a capacidade de usar a luz

Pergunte:

A radiação aumentou ou a capacidade fotossintética caiu?

Se a folha recebe a mesma radiação de ontem, mas hoje está sob déficit hídrico e com estômatos fechados, a causa primária não é necessariamente a luz.

Corrigir o componente hidráulico pode aumentar novamente o dreno de energia pela assimilação de carbono.

2. Água é uma ferramenta de fotoproteção indireta

Manter hidratação adequada:

  • preserva condutância estomática;
  • aumenta entrada de CO₂;
  • sustenta transpiração;
  • reduz temperatura foliar;
  • mantém o consumo de ATP e NADPH pela assimilação.

Em regiões de alta radiação e DPV, manejar água apenas pela umidade média diária do solo pode perder justamente as horas em que a folha sofre a maior pressão energética.

3. Nutrição precisa preservar o aparato, não superalimentá-lo

Mg, K, N, Mn, Fe, Cu e Zn possuem funções relacionadas direta ou indiretamente à fotossíntese e ao controle redox.

O ponto prático é:

corrigir deficiência.


Não há fundamento fisiológico para concluir que doses acima da suficiência continuarão elevando fotoproteção.


Uma folha deficiente em Mg ou K pode tornar-se sensível à alta luz porque perdeu capacidade de utilizar e exportar carbono.

4. Arquitetura do dossel também distribui energia

Folhas superiores completamente horizontais recebem grande carga radiativa enquanto folhas inferiores permanecem limitadas por luz.

Por isso, eficiência de dossel não é igual a maximizar a luz de cada folha.

Arquiteturas mais eretas, distribuição adequada de área foliar, densidade e espaçamento podem permitir que mais fótons cheguem às camadas intermediárias sem saturar tanto as superiores.

Em culturas como milho, soja e cana, essa distribuição pode ser tão importante quanto a capacidade fotossintética máxima da folha individual.

5. Em frutíferas, exposição repentina é particularmente perigosa

Poda ou desfolha que expõe de uma vez frutos desenvolvidos em sombra pode causar dano fotooxidativo mesmo sem uma temperatura extremamente elevada.

Por isso, em manga, uva e outras frutíferas, exposição gradual tende a ser mais segura que abertura brusca do dossel.

Quando o risco de queimadura é alto, filmes refletivos e telas podem ser ferramentas de manejo, desde que calibrados para não retirar luz em excesso.

6. Nem sempre aumentar o sombreamento melhora a fotossíntese do talhão

Se o problema é realmente excesso de carga energética, algum sombreamento pode ajudar.

Mas reduzir luz em uma cultura que já está limitada pela radiação disponível pode reduzir a produção de carbono.

O objetivo não é: menos luz.


É:

melhor distribuição da luz e menor período em que a energia absorvida excede a capacidade de uso.
Figura 4. A mesma irradiância pode ser produtiva ou excessiva dependendo de água, CO₂, temperatura, nutrição, atividade dos drenos e genética. O manejo deve atuar sobre o fator que reduziu a capacidade de utilizar a energia, e não apenas sobre a radiação incidente.

Conclusão

A fotossíntese depende de luz.

Mas não de luz ilimitada.

A folha funciona melhor quando a quantidade de energia capturada permanece compatível com sua capacidade de:

  • transportar elétrons;
  • produzir ATP e NADPH;
  • fixar CO₂;
  • utilizar carbono;
  • exportar fotoassimilados;
  • crescer e alimentar seus drenos.

Quando essa capacidade diminui, a luz que antes era útil passa a exceder a demanda.

A planta responde aumentando NPQ, alterando o gradiente de prótons, regulando o transporte de elétrons, dissipando energia e mobilizando sistemas antioxidantes.

Esses mecanismos não são sinais de fracasso.

São parte do funcionamento normal da fotossíntese.

O problema surge quando:

proteção + reparo < pressão de excitação + dano.


No PSII, isso aparece no acúmulo de centros danificados quando o ciclo de reparo de D1 não consegue acompanhar a taxa de fotodano.

No PSI, o risco é diferente: o dano é menos frequente, mas sua recuperação pode levar dias.

A luz flutuante acrescenta outra camada. Uma planta eficiente precisa proteger-se rapidamente quando sai da sombra para o sol e retirar essa proteção rapidamente quando retorna à sombra.

Se demora demais, perde carbono.

Se protege pouco, corre risco de fotodano.

É por isso que eficiência fotossintética não pode ser reduzida a:

“quanto maior a luz, melhor.”


Arroz mostra que responder rapidamente às mudanças de irradiância altera o ganho diário de carbono.

Soja mostra que a velocidade da fotoproteção pode limitar fotossíntese, embora a tradução disso para rendimento precise ser avaliada com rigor.

Café mostra que a depressão de meio-dia envolve a interação entre luz, DPV, temperatura e estômatos.

Milho e cana mostram que mesmo plantas C4 podem sofrer fotoinibição quando a utilização da energia cai, como ocorre sob frio.

Manga mostra que, em ambientes de alta carga térmica e radiativa, reduzir parte da energia incidente pode ser uma estratégia agronomicamente eficiente.

A síntese é simples:

A luz só aumenta a produção enquanto a planta consegue transformar essa energia em metabolismo e carbono. Depois desse ponto, a eficiência depende menos de captar mais fótons e mais de saber o que fazer com eles.

Em cinco pontos

  1. Mais luz aumenta a fotossíntese apenas até a capacidade metabólica começar a saturar.
  2. NPQ é principalmente fotoproteção, não evidência automática de dano.
  3. Fotoinibição depende do balanço entre fotodano e capacidade de reparo do aparato fotossintético.
  4. Luz flutuante cria perdas de carbono quando a fotoproteção demora a relaxar.
  5. Água, DPV, temperatura, nutrição e força dos drenos determinam quando uma determinada irradiância passa a ser excessiva.

Perguntas frequentes

Alta luz sempre causa fotoinibição?

Não. Uma planta bem aclimatada pode utilizar ou dissipar grandes quantidades de energia sem acumular dano. O risco aumenta quando a absorção de energia excede de forma persistente a capacidade de fotoquímica, dissipação e reparo.

NPQ alto significa que a planta está estressada?

Não necessariamente. NPQ alto pode indicar que a fotoproteção está funcionando. É mais informativo analisar NPQ junto com Y(II), Y(NPQ), Y(NO), trocas gasosas e recuperação posterior.

Fv/Fm abaixo de 0,83 significa dano?

Não automaticamente. Valores próximos de 0,80 a 0,83 são comuns em muitas folhas saudáveis, mas espécie, aclimatação e protocolo influenciam a medida. O mais importante é comparar com uma referência da própria cultura e observar a recuperação.

Uma planta C4 pode sofrer fotoinibição?

Sim. Milho e cana apresentam alta capacidade de uso de luz, mas não são imunes. Frio, seca, deficiência nutricional ou outras limitações podem reduzir o uso metabólico da energia e aumentar a pressão sobre os fotossistemas.

Sombreamento sempre melhora a eficiência fotossintética?

Não. Pode beneficiar folhas ou frutos sob carga energética excessiva, mas sombra demais reduz a oferta de fótons e pode diminuir produtividade. O objetivo é otimizar distribuição, não simplesmente reduzir luz.

Nutrição foliar pode proteger contra alta luz?

Corrigir uma deficiência pode melhorar a capacidade fotossintética e antioxidante. Isso é diferente de afirmar que fornecer mais nutrientes além da suficiência produzirá fotoproteção adicional. Mg e K são exemplos claros dessa distinção.

Referências

Baca Cabrera, J. C. et al. 2020. Atmospheric CO₂ and VPD alter diel patterns of leaf growth and carbon use in perennial ryegrass. New Phytologist.

Cakmak, I. 2005. The role of potassium in alleviating detrimental effects of abiotic stresses in plants. Journal of Plant Nutrition and Soil Science, 168, 521-530. DOI: 10.1002/jpln.200420485.

Cakmak, I.; Kirkby, E. A. 2008. Role of magnesium in carbon partitioning and alleviating photooxidative damage. Physiologia Plantarum, 133, 692-704. DOI: 10.1111/j.1399-3054.2007.01042.x.

De Souza, A. P. et al. 2022. Soybean photosynthesis and crop yield are improved by accelerating recovery from photoprotection. Science, 377, 851-854. DOI: 10.1126/science.adc9831.

Foyer, C. H.; Kunert, K. 2024. The ascorbate-glutathione cycle coming of age. Journal of Experimental Botany, 75, 2682-2699. DOI: 10.1093/jxb/erae023.

Hamdy, A. E. et al. 2022. Kaolin improves photosynthetic pigments and antioxidant content and decreases sunburn of mangoes: field study. Agronomy, 12, 1535. DOI: 10.3390/agronomy12071535.

Kramer, D. M. et al. 2005. Plasticity in light reactions of photosynthesis for energy production and photoprotection. Journal of Experimental Botany, 56, 395-406. DOI: 10.1093/jxb/eri022.

Kromdijk, J. et al. 2016. Improving photosynthesis and crop productivity by accelerating recovery from photoprotection. Science, 354, 857-861. DOI: 10.1126/science.aai8878.

Nishiyama, Y.; Allakhverdiev, S. I.; Murata, N. 2011. Protein synthesis is the primary target of reactive oxygen species in the photoinhibition of photosystem II. Physiologia Plantarum, 142, 35-46. DOI: 10.1111/j.1399-3054.2011.01457.x.

Patel-Tupper, D.; Niyogi, K. K. et al. 2024. Perspectives on improving photosynthesis to increase crop yield. The Plant Cell, 36, 3944-3973.

Sonoike, K. 2025. Photoinhibition and protection of photosystem I. Plant and Cell Physiology, 66, 1562-1574. DOI: 10.1093/pcp/pcaf079.

Sinclair, T. et al. 2023. Comment on “Soybean photosynthesis and crop yield are improved by accelerating recovery from photoprotection”. Science, 379, eade8506. DOI: 10.1126/science.ade8506.
AF
Sobre o autor
André Ferraz

Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.