Neste artigo23 tópicos
- Chamamos B2, K e B12 de vitaminas. Mas essa palavra diz muito sobre a nossa nutrição e, por si só, quase nada sobre o que essas moléculas representam para uma planta.
- Neste artigo
- O que significa “vitamina” para uma planta?
- B2: a vitamina desaparece e surgem as flavinas
- Se a planta já produz B2, por que a aplicação externa pode funcionar?
- K1: uma vitamina dentro da máquina fotossintética
- K1 e K3: nomes próximos, moléculas diferentes
- B12: o caso que obriga a separar absorção de necessidade
- A planta absorveu B12. E daí?
- Três vitaminas, três histórias fisiológicas
- Vitaminas exógenas como bioestimulantes: o que a evidência permite afirmar?
- Função endógena e resposta à aplicação são problemas diferentes
- Implicações práticas: como interpretar vitaminas em produtos agrícolas?
- Conclusão
- Em cinco pontos
- Perguntas frequentes
- Plantas precisam de vitamina B2?
- B2 aplicada pode funcionar como bioestimulante?
- Vitamina K1 participa da fotossíntese?
- K3 pode ser usada como equivalente de K1?
- Plantas produzem vitamina B12?
- Se uma planta absorve B12, isso prova que ela precisa dela?
- Referências
Chamamos B2, K e B12 de vitaminas. Mas essa palavra diz muito sobre a nossa nutrição e, por si só, quase nada sobre o que essas moléculas representam para uma planta.
Há palavras que, de tanto serem usadas, começam a carregar consigo explicações que nunca foram realmente dadas. “Vitamina” é uma delas.
Quando alguém fala em vitamina B2, vitamina K ou vitamina B12, a associação parece evidente: são compostos de que um organismo necessita, não produz em quantidade suficiente e precisa receber de fora.
Para nós, isso funciona razoavelmente bem.
Para uma planta, não.
A planta não é um animal imóvel que aprendeu a fazer fotossíntese. Seu metabolismo foi organizado sob outras exigências evolutivas, com outras vias biossintéticas e outra relação com o ambiente. Muitas moléculas que classificamos como vitaminas justamente porque precisamos obtê-las pela alimentação são produzidas normalmente pelas próprias plantas.
A riboflavina, vitamina B2, é uma delas.
A filoquinona, vitamina K1, também.
A cobalamina, vitamina B12, não.
Poderíamos parar aqui e já teríamos três situações fisiológicas bastante diferentes reunidas sob a mesma palavra. Mas a diferença vai além.
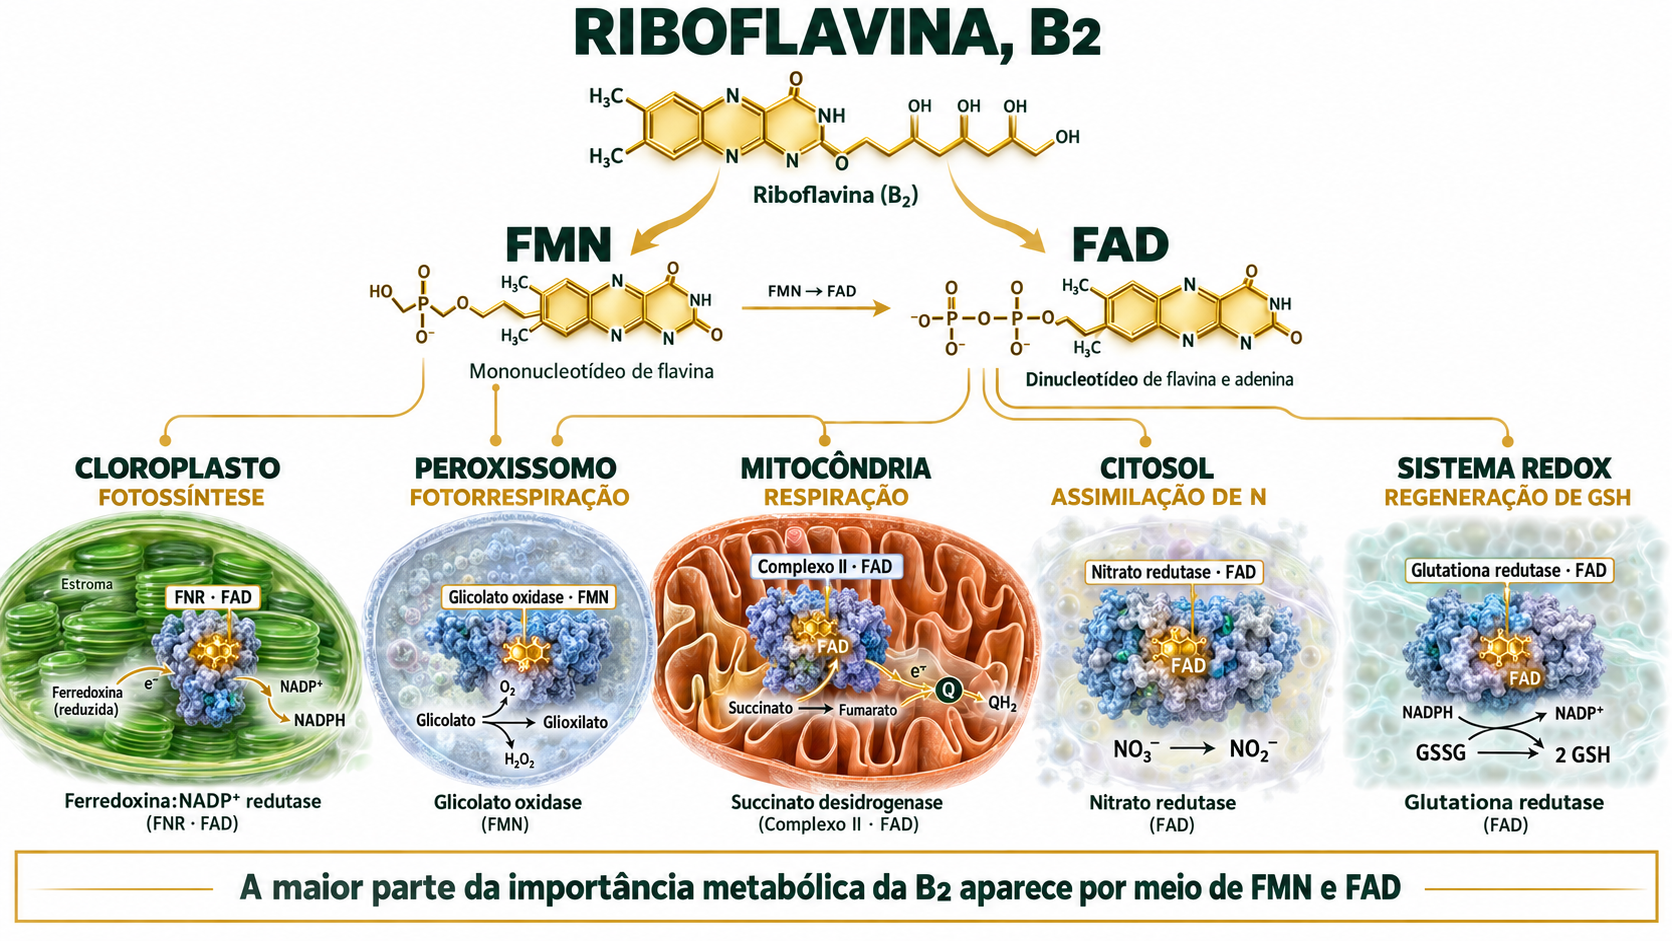
A riboflavina produzida pela planta alimenta a formação de FMN e FAD, cofatores que aparecem na fotossíntese, respiração, fotorespiração, assimilação de nitrato e controle redox.
A filoquinona entra fisicamente na arquitetura do Fotossistema I e participa da transferência de elétrons.
A B12, por outro lado, pode ser absorvida por uma planta vascular sem que exista, nessa planta, uma necessidade coenzimática conhecida equivalente àquela observada em humanos, animais ou muitas microalgas. Essa diferença entre as três moléculas está bem estabelecida pela fisiologia e pela genética vegetal.
Eis o ponto central deste artigo:
absorver uma molécula, responder à sua aplicação e depender dela metabolicamente são três coisas diferentes.
Boa parte da confusão sobre “vitaminas para plantas” nasce justamente da mistura dessas três ideias.
Por isso, antes de discutir se B2, K1 ou B12 podem funcionar como bioestimulantes, é preciso reconstruir o que cada uma dessas moléculas realmente faz dentro da planta.
Nota de nomenclatura: K1, neste artigo, significa vitamina K1 ou filoquinona. Não se refere ao elemento mineral potássio, representado agronomicamente por K.
Neste artigo
Vamos acompanhar três histórias fisiológicas diferentes. Primeiro, uma vitamina humana que a própria planta produz e converte em cofatores essenciais. Depois, uma quinona inserida no coração do transporte fotossintético de elétrons. Por fim, uma molécula que plantas vasculares conseguem absorver, mas da qual não apresentam dependência metabólica conhecida.
O que significa “vitamina” para uma planta?
A palavra “vitamina” não nasceu da fisiologia vegetal.
Ela surgiu para descrever compostos orgânicos necessários à nutrição de humanos e animais. E essa origem interfere na maneira como pensamos quando encontramos a mesma palavra aplicada às plantas.
A molécula química pode ser a mesma. A relação do organismo com ela pode ser completamente diferente.
Uma planta pode sintetizar aquilo que, para nós, é uma vitamina. Nesse caso, dizer que a molécula é essencial e dizer que ela precisa ser fornecida externamente são afirmações distintas.
O magnésio ajuda a perceber a diferença. A planta precisa de Mg e necessariamente o obtém do ambiente, porque não existe maneira de fabricar um elemento químico dentro da célula.
Com a riboflavina, a situação é outra. A planta possui uma rota metabólica capaz de produzi-la.
Quando essa rota é profundamente comprometida, o crescimento vegetal também é comprometido. Isso demonstra que o metabolismo de riboflavina é essencial. Não demonstra que uma lavoura saudável apresente uma necessidade agronômica de receber B2 por pulverização.
Essa distinção é o ponto de partida.
Para interpretar qualquer “vitamina para plantas”, três questões precisam permanecer separadas: se a planta sintetiza a molécula, se alguma reação endógena depende dela e o que acontece quando a molécula é fornecida externamente.
As respostas podem ser completamente diferentes.
B2 e K1 são sintetizadas e apresentam funções endógenas essenciais em plantas vasculares. Para B12, o quadro se inverte: plantas vasculares não apresentam biossíntese de novo nem uma função coenzimática essencial conhecida, embora possam absorver cobalamina e responder a determinados tratamentos externos.
A palavra “vitamina”, portanto, informa menos sobre a fisiologia vegetal do que parece.
B2: a vitamina desaparece e surgem as flavinas
A vitamina B2 é a riboflavina.
Mas compreender seu papel na planta exige rapidamente deixar a riboflavina livre em segundo plano e acompanhar aquilo em que ela se transforma.
Plantas sintetizam riboflavina de novo, com a via concentrada principalmente nos plastídios. A partir dela são formados FMN, flavina mononucleotídeo, e FAD, flavina adenina dinucleotídeo.
É aqui que sua importância fisiológica ganha outra dimensão.
FMN e FAD são cofatores de flavoproteínas. E flavoproteínas aparecem justamente em alguns dos pontos em que a célula precisa controlar a transferência de elétrons.
Tsitsekian et al. mostraram recentemente que o metabolismo vegetal de flavinas é dinamicamente regulado ao longo do desenvolvimento e em resposta a estresses. O trabalho também reforça que FMN e FAD sustentam processos como fotossíntese, fotorespiração, transporte mitocondrial de elétrons, assimilação de N e equilíbrio redox.
Na fotossíntese, a ferredoxina⁺ redutase contém FAD e participa da formação do NADPH utilizado posteriormente na assimilação de carbono e em várias outras rotas biossintéticas.
Na fotorespiração, glicolato oxidase é uma enzima dependente de FMN.
Na mitocôndria, a succinato desidrogenase contém FAD e faz a ligação entre o ciclo dos ácidos tricarboxílicos e a cadeia respiratória.
Na assimilação do N, a nitrato redutase possui um domínio FAD envolvido na transferência de elétrons necessária para a redução de NO₃⁻.
E no controle redox, glutationa redutase e outras flavoproteínas ajudam a manter sistemas fundamentais para lidar com oxidação e redução dentro da célula.
A mesma origem química aparece, portanto, em processos que frequentemente estudamos separadamente: carbono, energia, N e estado redox.
É por isso que comprometer profundamente a síntese de riboflavina não produz um único sintoma específico. A perturbação alcança uma rede enorme de reações.
Para a planta, B2 é menos uma “vitamina que precisa ser consumida” e mais a origem de cofatores que tornam possível uma parte importante do metabolismo redox.
Essa diferença muda a interpretação agronômica.
Se a planta já produz B2, por que a aplicação externa pode funcionar?
Esta é a parte que torna a riboflavina particularmente interessante.
Uma primeira explicação possível seria imaginar que a aplicação externa simplesmente aumenta a disponibilidade de riboflavina para formação de FMN e FAD.
Em alguns contextos, isso pode contribuir para a resposta.
Mas a evidência mostra que não é toda a história.
Riboflavina aplicada externamente também pode funcionar como indutora ou primer de respostas vegetais.
Zhang et al. (2009) observaram em Arabidopsis que riboflavina preparava a planta para responder de maneira mais intensa à infecção por Pseudomonas syringae. Quando o desafio surgia, respostas relacionadas à defesa, como H₂O₂, calose e expressão de genes específicos, eram potencializadas.
Nie e Xu (2016) acrescentaram elementos importantes ao mecanismo. MPK3 e MPK6 participaram da resistência induzida por riboflavina, enquanto intervenções sobre Ca²⁺ e H₂O₂ reduziram componentes da resposta. Isso é muito mais compatível com uma rede de sinalização do que com a interpretação de que a molécula apenas “nutriu” a planta.
O conceito de priming merece atenção.
Uma planta primada não precisa manter permanentemente toda a maquinaria de defesa no máximo. Ela passa a responder com maior velocidade ou intensidade quando o estímulo aparece.
Isso pode ser energeticamente mais interessante do que sustentar defesas constitutivamente elevadas.
A história não termina nos patógenos.
Jiadkong et al. investigaram arroz sob salinidade e observaram que o pré-tratamento com riboflavina esteve associado a maior biomassa, menor MDA e H₂O₂ e melhor controle da distribuição de Na⁺. A análise também encontrou aumento da própria riboflavina nos tecidos e mudanças em genes de sua biossíntese e de transporte iônico.
Outro trabalho do mesmo grupo, em condições de solo salinizado, também mostrou respostas positivas de crescimento após aplicação de riboflavina.
Isso sugere algo mais interessante do que escolher entre “metabolismo” ou “sinalização”.
Dependendo do contexto, os dois podem coexistir.
A molécula externa pode alterar o pool metabólico, participar diretamente de processos redox e, simultaneamente, modificar redes regulatórias.
O problema é transformar essa possibilidade em recomendação agronômica.
Os experimentos disponíveis utilizam espécies, doses, formas de aplicação e condições de estresse muito diferentes. Há trabalhos na faixa micromolar e estudos de priming imune em concentrações centenas de vezes superiores.
Não existe uma “dose de vitamina B2 para plantas” que possa ser universalizada.
Existe uma molécula biologicamente ativa cuja resposta depende do tecido, da concentração, da espécie, do momento e do processo fisiológico que está sendo modulado.
K1: uma vitamina dentro da máquina fotossintética
Se B2 chama atenção pela quantidade de processos em que seus derivados participam, K1 chama atenção por outra razão.
Sua função mais emblemática acontece dentro do próprio Fotossistema I.
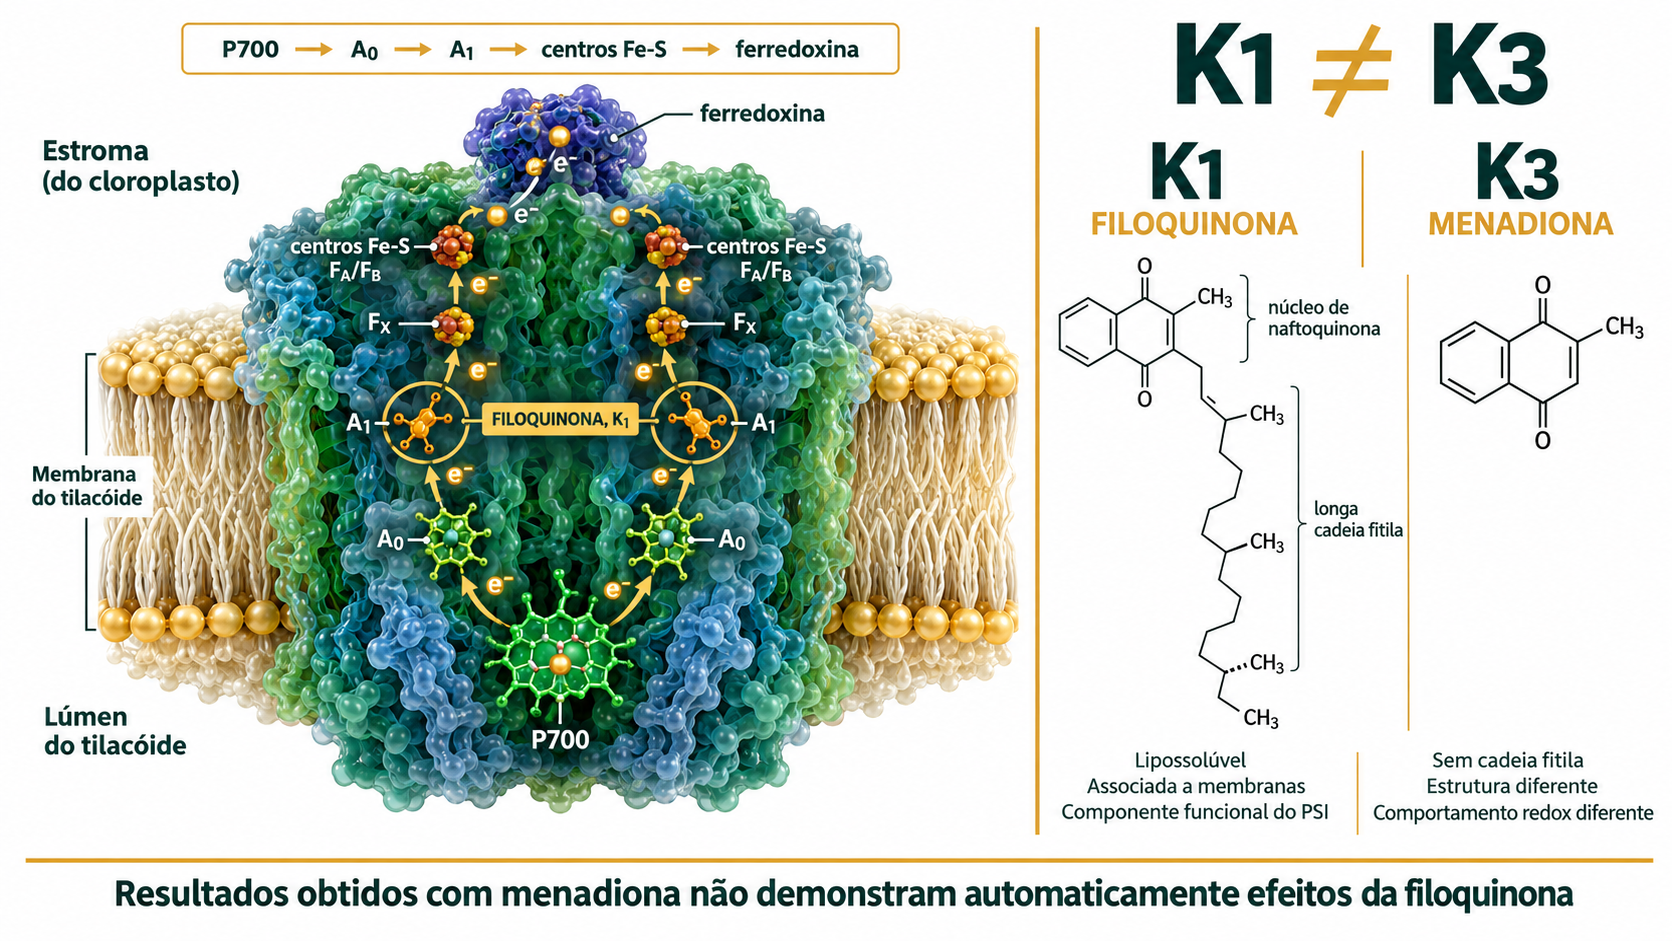
A vitamina K1 vegetal é a filoquinona, uma naftoquinona lipossolúvel com cadeia fitila. Sua biossíntese é compartimentalizada, envolvendo plastídios e peroxissomos antes de chegar às etapas finais associadas aos sistemas de membrana.
A importância dessa via foi demonstrada geneticamente há bastante tempo. Gross et al. identificaram o locus PHYLLO e mostraram que a deficiência severa de filoquinona compromete fortemente o PSI e o crescimento fotoautotrófico.
O motivo aparece na arquitetura do próprio fotossistema.
O PSI possui dois sítios A₁, um em cada ramo de transferência eletrônica, ocupados por filoquinona.
Essas moléculas recebem elétrons de A₀ e participam de sua transferência em direção aos centros ferro-enxofre.
K1 não está apenas “associada à fotossíntese”.
Ela está dentro da cadeia de transferência de elétrons do PSI.
Isso já seria suficiente para demonstrar sua importância fisiológica. Mas a literatura mais recente mostra que a participação da filoquinona na fisiologia redox é ainda mais interessante.
Kozuleva et al. demonstraram que, sob alta irradiância, a redução de O₂ no PSI ocorre principalmente na filoquinona de um dos ramos do centro de reação. Os autores interpretam a reação de Mehler nesse sítio como uma possível válvula para situações em que o lado aceptor do PSI se encontra excessivamente reduzido.
Isso torna inadequada uma simplificação frequente: chamar K1 apenas de antioxidante.
Ela participa de uma rede em que a transferência de elétrons pode, dependendo do estado do sistema, inclusive resultar na formação de EROs.
A revisão de Kruk et al. de 2026 também destaca novas conexões da vitamina K com sistemas redox vegetais e com proteínas como LTO1.
Há, portanto, evidência muito forte para uma função endógena.
A questão agronômica é outra.
Saber que K1 é essencial dentro do PSI não demonstra que K1 aplicada sobre uma folha conseguirá entrar no PSI.
A distância entre essas duas afirmações é grande.
Uma filoquinona aplicada externamente teria de ser absorvida, atravessar compartimentos celulares, alcançar o cloroplasto, integrar-se à membrana tilacoidal e finalmente ocupar um sítio funcional em um complexo proteico altamente organizado.
Até agora, não existe uma base comparável à de B2 demonstrando essa sequência após aplicação agrícola de K1.
O fato de a molécula ser essencial endogenamente, portanto, não constitui por si só uma justificativa para aplicação externa.
K1 e K3: nomes próximos, moléculas diferentes
Aqui a nomenclatura pode produzir um erro particularmente fácil.
Vitamina K1 é filoquinona.
Vitamina K3 é menadiona.
Não são apenas duas versões comerciais de uma mesma molécula.
A filoquinona possui a longa cadeia fitila que contribui para sua lipofilicidade e para sua associação com membranas.
A menadiona não possui essa cadeia.
Isso modifica solubilidade, comportamento redox e interação com sistemas biológicos. A literatura recente sobre vitamina K em organismos fotossintéticos deixa clara essa distinção estrutural e funcional.
Por isso, estudos em que menadiona ou derivados de menadiona alteram respostas vegetais podem ser cientificamente válidos e, ainda assim, não constituírem evidência de bioestimulação por filoquinona.
Esse ponto merece destaque porque os dois compostos podem aparecer sob a expressão genérica “vitamina K”.
Para interpretar fisiologia, o nome genérico não basta.
A molécula importa.
B12: o caso que obriga a separar absorção de necessidade
Chegamos à molécula que talvez provoque a maior confusão.
Vitamina B12, ou cobalamina, é indispensável para nós. Isso cria uma tendência quase espontânea de imaginar que fornecê-la a uma planta equivale a entregar uma molécula de que ela também necessita.
Para a maioria das culturas agrícolas, essa ideia não se sustenta.
Plantas vasculares não possuem a via de biossíntese de novo de cobalamina. A produção completa desses corrinoides está associada a determinados procariontes.
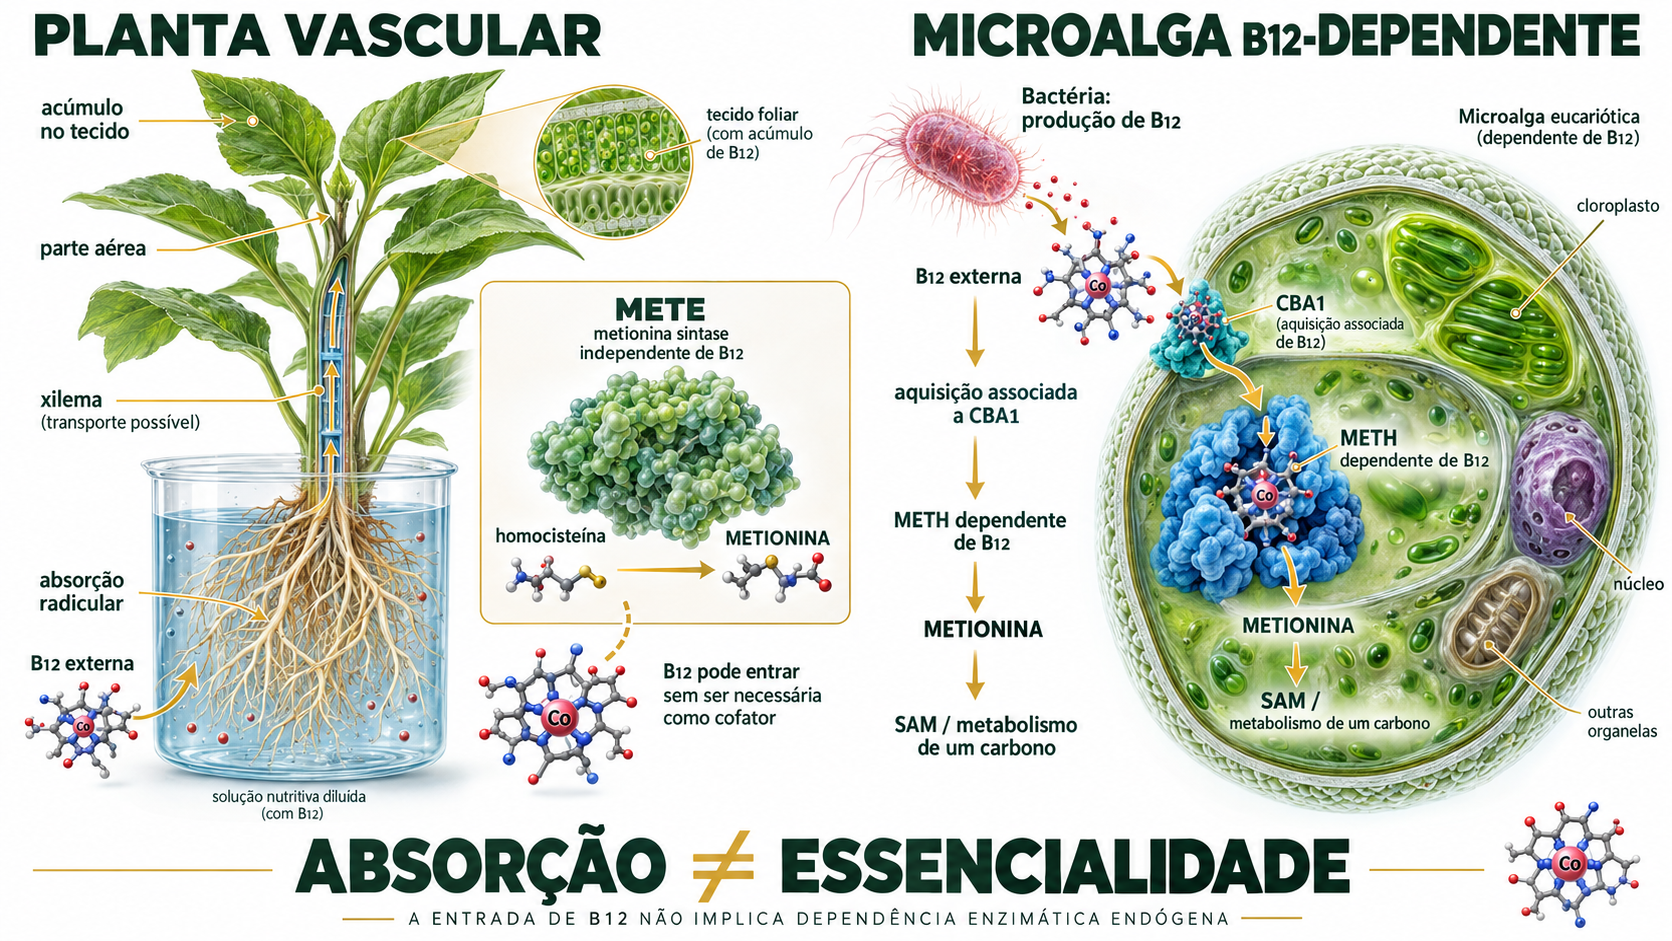
Mais importante ainda: plantas vasculares conseguem realizar a síntese de metionina utilizando predominantemente METE, uma metionina sintase independente de B12.
Em vários organismos B12-dependentes existe METH, que utiliza cobalamina. Essa situação é comum em diferentes linhagens de microalgas, mas não representa a fisiologia normal das angiospermas.
Em 2024, Dorrell et al. tornaram a história evolutiva mais interessante.
Analisando mais de 1.600 genomas e transcriptomas, os autores encontraram METH e outros componentes associados ao metabolismo de cobalamina em antóceros. Isso sugere que o ancestral das plantas terrestres pode ter retido metabolismo relacionado à B12 e que essas funções foram posteriormente perdidas em diferentes linhagens.
Não significa, porém, que culturas vasculares modernas dependam de B12.
Nem mesmo a dependência fisiológica dos antóceros identificados geneticamente está completamente demonstrada.
Microalgas fornecem o contraponto.
Em espécies dependentes de cobalamina, a molécula precisa vir do ambiente, muitas vezes produzida por bactérias associadas.
Sayer et al. mostraram que CBA1, Cobalamin Acquisition Protein 1, é necessária para aquisição eficiente de B12 tanto em Chlamydomonas quanto em Phaeodactylum. Aqui existe uma verdadeira relação nutricional com B12.
Em culturas agrícolas, não.
O ponto pode ser resumido de maneira bastante simples:
a planta vascular não sintetiza B12;
pode absorver B12;
mas não apresenta uma dependência metabólica B12 conhecida equivalente à de organismos B12-dependentes.
E é justamente a segunda afirmação que frequentemente confunde a interpretação da terceira.
A planta absorveu B12. E daí?
Em 2026, Eldridge et al. utilizaram cultivo aeropônico para fornecer cianocobalamina a brotos de ervilha.
A estratégia funcionou.
As raízes absorveram a molécula, B12 foi translocada para a parte aérea e os tecidos puderam ser enriquecidos a ponto de servir como veículo de biofortificação para a dieta humana. O trabalho foi conduzido inclusive em um sistema comercial e escalável.
É um resultado tecnicamente importante.
Mas seu significado fisiológico precisa ser descrito com precisão.
O experimento demonstrou aquisição e biofortificação.
Não demonstrou uma deficiência de B12 na ervilha.
Esse exemplo torna visível uma distinção que vale para muitos outros compostos:
a capacidade de absorver uma substância não demonstra dependência metabólica dela.
Ainda assim, B12 pode modificar a fisiologia da planta.
Keshavarz e Sadegh-Ghol Moghadam utilizaram condicionamento de sementes de feijão com 0, 11 e 22 µM de cobalamina e posteriormente impuseram salinidade de 75 mM NaCl. Os tratamentos com B12 reduziram diversos efeitos associados ao estresse.
Mais recentemente, Akçay avaliou B12 em feijão sob toxicidade por Cu. O tratamento esteve associado a alterações de crescimento, estado hídrico, peroxidação e expressão de Pv-MATE14.
Esses experimentos não devem ser descartados apenas porque B12 não é uma vitamina essencial para angiospermas.
Se há resposta reproduzível, existe um fenômeno fisiológico a ser explicado.
Mas a explicação precisa acompanhar a evidência.
Até agora, não foi identificada uma enzima B12-dependente em culturas vasculares que explique esses resultados como correção de uma necessidade coenzimática.
Também não existe uma via específica de percepção da cobalamina em plantas vasculares comparável àquelas já conhecidas para muitos hormônios ou peptídeos.
O mecanismo primário permanece aberto.
Por isso, a classificação mais adequada é bioestimulação experimental, e não correção de deficiência vitamínica.
Três vitaminas, três histórias fisiológicas
Agora podemos retirar por alguns instantes a palavra “vitamina” e olhar apenas para a fisiologia.
B2 é produzida pela planta. Sua conversão em FMN e FAD sustenta uma grande rede de flavoproteínas. Existe ainda evidência de que riboflavina aplicada externamente modifique respostas de defesa e de estresse.
K1 também é sintetizada pela planta e possui função endógena essencial. Sua posição no Fotossistema I é muito bem caracterizada. Mas a evidência de que filoquinona aplicada externamente produza benefício agronômico continua insuficiente.
B12 não é sintetizada por plantas vasculares nem possui uma função coenzimática essencial conhecida nessas plantas. Mesmo assim, pode ser absorvida e alguns tratamentos externos alteram respostas sob estresse.
O contraste é tão grande que tratar as três como uma única categoria de “vitaminas bioestimulantes” elimina justamente a informação mais importante.
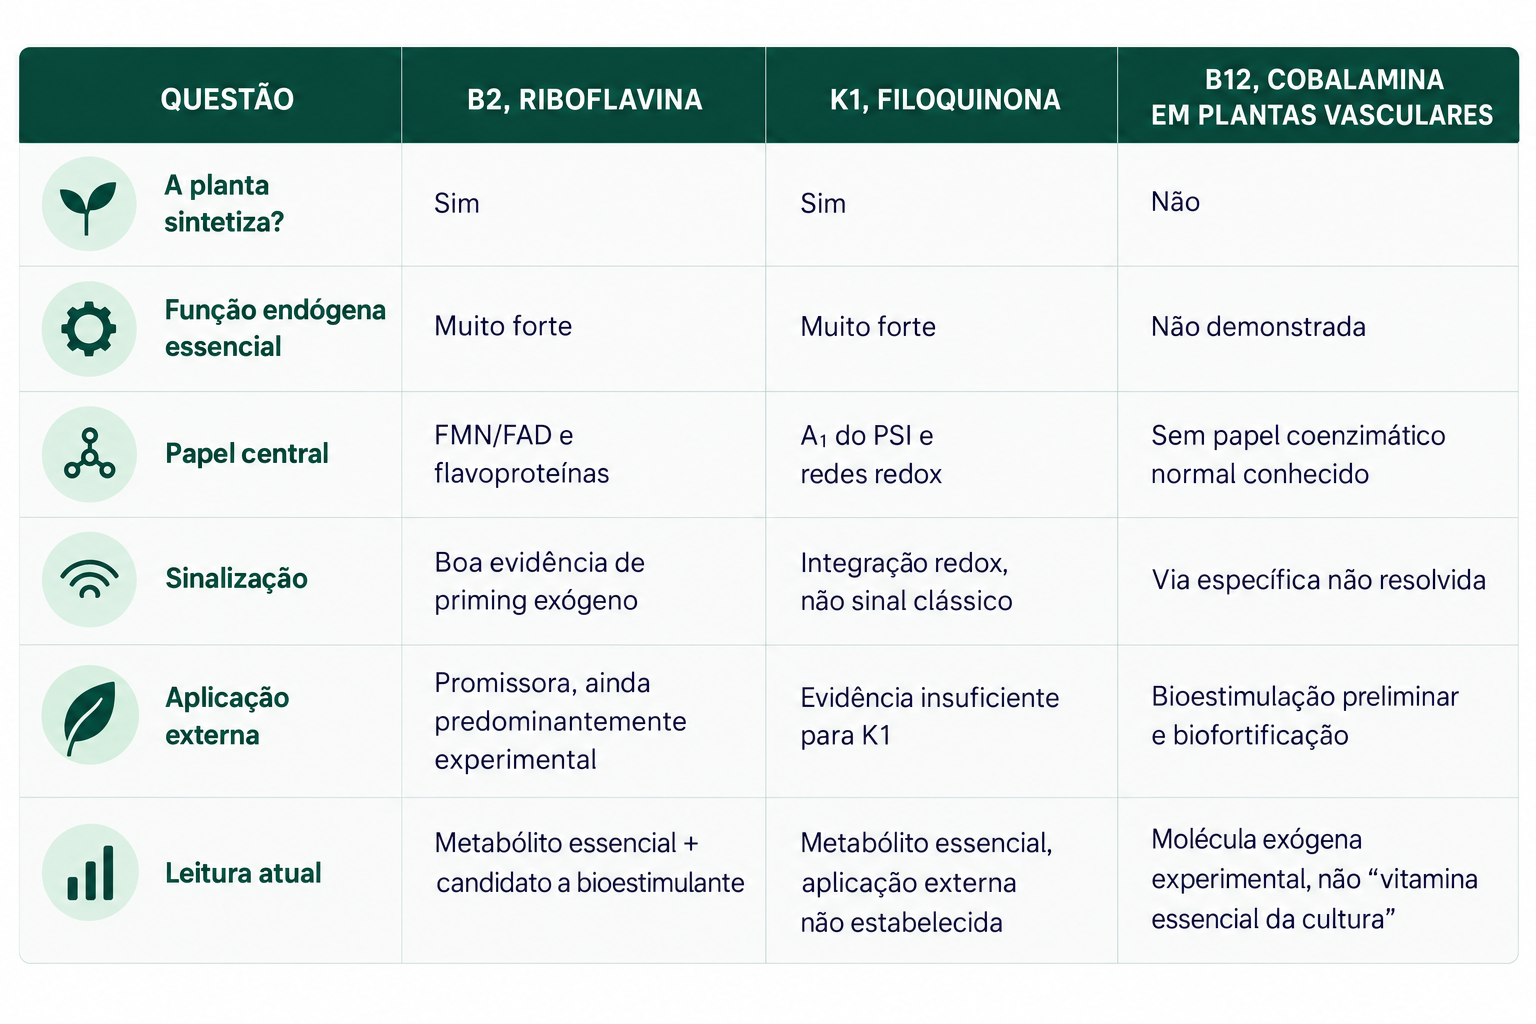
A comparação também mostra por que o efeito de uma aplicação não pode ser deduzido simplesmente a partir da função endógena da molécula.
Vitaminas exógenas como bioestimulantes: o que a evidência permite afirmar?
Uma substância não precisa ser essencial para produzir uma resposta útil.
Esse é um ponto importante na ciência dos bioestimulantes.
Se uma molécula aplicada externamente prepara a planta para responder melhor a um estresse, modifica relações iônicas, altera o estado redox ou melhora um processo fisiológico, pode haver interesse agronômico mesmo sem existir uma “deficiência” daquela substância.
O problema surge quando o resultado experimental e sua explicação são tratados como se fossem a mesma coisa.
Se B12 melhora o desempenho de feijão sob salinidade, temos um resultado.
Dizer que isso aconteceu porque a cultura precisava de B12 como cofator metabólico exige uma evidência que atualmente não existe.
Se menadiona modifica a tolerância de uma planta, temos um resultado sobre K3.
Transformar isso automaticamente em “vitamina K1 melhora fotossíntese” mistura duas moléculas.
Se riboflavina induz MPK3 e MPK6, temos evidência de sinalização.
Isso não significa que qualquer dose de B2 aumentará FAD, nitrato redutase e produtividade.
O rigor fisiológico serve exatamente para evitar esses saltos.
Ele não diminui a relevância de uma tecnologia.
Ajuda a descobrir o que ela realmente está fazendo.
Função endógena e resposta à aplicação são problemas diferentes
Quando descobrimos que uma molécula ocupa uma função importante dentro da planta, surge quase automaticamente a ideia de fornecê-la externamente.
Mas o metabolismo vegetal não funciona como um reservatório em que adicionar mais de um componente importante melhora indefinidamente o sistema.
O PSI contém filoquinona. Isso não significa que mais filoquinona sobre a superfície foliar produzirá mais PSI.
A nitrato redutase possui FAD. Isso não significa que mais riboflavina necessariamente aumentará a assimilação de nitrato.
A molécula pode não ser limitante.
Sua biossíntese pode já atender à demanda.
O local de aplicação pode estar separado do local de ação por várias barreiras.
E a molécula externa pode acabar provocando uma resposta completamente diferente daquela que exerce quando produzida endogenamente.
B2 fornece talvez o melhor exemplo.
Uma coisa é sua função como precursora de FMN e FAD.
Outra é o priming observado após aplicação.
As duas pertencem à mesma molécula, mas não são a mesma explicação fisiológica.
É aqui que a interpretação de bioestimulantes ganha qualidade.
O que a planta faz com a molécula que ela própria produz e o que acontece quando colocamos essa molécula do lado de fora são duas perguntas experimentais diferentes.
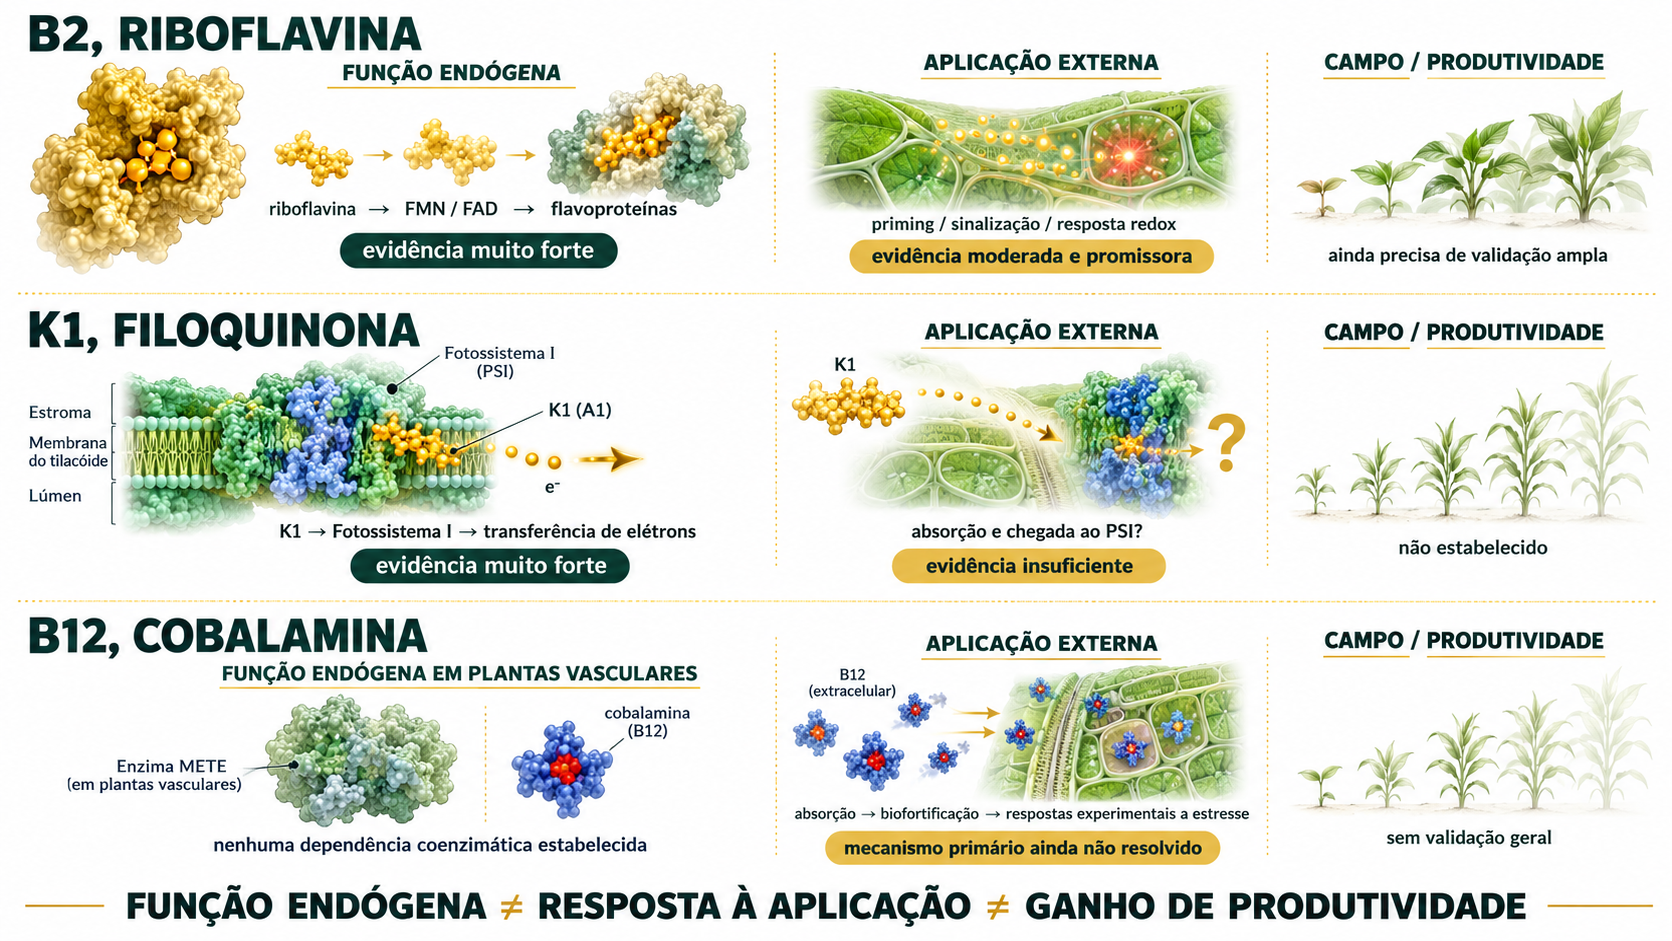
Implicações práticas: como interpretar vitaminas em produtos agrícolas?
O simples fato de um produto “conter vitaminas” informa muito pouco sobre o que ele deveria fazer na planta.
Para B2, existe justificativa científica consistente para investigar priming e tolerância a estresses. Ainda assim, concentração, cultura, tecido, momento e condição ambiental precisam ser considerados. A maior parte das evidências agronomicamente promissoras ainda vem de ambiente controlado.
Para K1, a situação é mais restritiva. A função dentro do Fotossistema I é indiscutível, mas a cadeia causal entre aplicação externa e incorporação funcional no PSI permanece sem demonstração suficiente. Nesse caso, o mecanismo endógeno não pode ser utilizado sozinho para justificar uma alegação de aplicação foliar.
Para B12, existe espaço para pesquisa em bioestimulação e um campo já bastante concreto em biofortificação alimentar. Mas falar em “repor B12 da planta” não corresponde ao conhecimento atual sobre culturas vasculares.
Há ainda um cuidado adicional com cobalamina e microbioma.
Microrganismos capazes de produzir B12 frequentemente produzem também auxinas, sideróforos, ACC deaminase e inúmeros outros metabólitos. Se uma bactéria produtora de B12 melhora o crescimento vegetal, isso não demonstra que B12 foi a molécula responsável.
Separar esses efeitos exigiria comparar microrganismos geneticamente equivalentes que diferissem especificamente na capacidade de produzir B12, além de complementar o sistema com cobalamina purificada.
Esse tipo de experimento mostra a distância entre encontrar uma associação e estabelecer um mecanismo.
Conclusão
Talvez o maior problema da expressão “vitaminas para plantas” seja que ela parece explicar alguma coisa antes que qualquer mecanismo tenha sido explicado.
B2, K1 e B12 mostram por que isso merece cuidado.
Riboflavina pertence ao metabolismo normal das plantas. Seus derivados FMN e FAD participam de uma rede enorme de reações de transferência de elétrons, ligando fotossíntese, respiração, fotorespiração, N e homeostase redox.
Quando aplicada externamente, entretanto, B2 também pode assumir outra função e agir como indutora ou primer de respostas vegetais.
K1 é igualmente endógena e essencial. Sua função mais emblemática ocorre no Fotossistema I, onde filoquinonas participam diretamente da transferência eletrônica e de respostas redox associadas à condição do lado aceptor.
Mas nada disso demonstra que uma aplicação externa de K1 seja capaz de reproduzir esse papel.
E resultados com K3 não resolvem essa lacuna.
B12 completa o contraste.
Plantas vasculares podem absorver cobalamina. Alguns tratamentos externos podem melhorar respostas sob estresse. É possível inclusive acumular B12 nos tecidos vegetais e utilizá-los como alimento biofortificado.
Mas absorção, resposta e essencialidade não são sinônimos.
Assim, voltamos ao ponto inicial.
As vitaminas exercem nas plantas as mesmas funções que associamos a elas em animais e humanos?
Não.
A molécula pode ser a mesma.
A fisiologia não é.
E a maneira mais segura de interpretar qualquer vitamina aplicada às plantas é reconstruir seu caminho completo: se a planta a produz, qual reação depende dela, onde essa reação acontece, o que muda quando fornecemos a molécula externamente e, finalmente, se essa mudança se converte em desempenho agronômico.
Sem essa sequência, ficamos com o nome.
Com ela, começamos a entender a planta.
Em cinco pontos
- B2 é essencial ao metabolismo vegetal, principalmente porque origina FMN e FAD, cofatores de numerosas flavoproteínas.
- Riboflavina aplicada externamente pode atuar como primer, um fenômeno diferente da sua função metabólica endógena.
- K1 é componente funcional do Fotossistema I, mas sua importância endógena não demonstra eficácia de aplicações externas.
- K1 e K3 são moléculas diferentes, e resultados com menadiona não devem ser automaticamente atribuídos à filoquinona.
- Plantas vasculares podem absorver B12 sem depender dela metabolicamente, tornando “absorção não é essencialidade” uma das principais mensagens do tema.
Perguntas frequentes
Plantas precisam de vitamina B2?
Elas precisam do metabolismo de riboflavina e de seus derivados FMN e FAD. Como sintetizam riboflavina, isso não equivale a dizer que B2 normalmente precise ser fornecida como um nutriente externo.
B2 aplicada pode funcionar como bioestimulante?
Há evidências de priming de defesa e respostas positivas sob alguns estresses, incluindo salinidade. Ainda faltam padronização de dose, validação multiambiente e maior volume de estudos com produtividade como desfecho.
Vitamina K1 participa da fotossíntese?
Sim. A filoquinona ocupa os sítios A₁ do Fotossistema I e participa diretamente da transferência de elétrons.
K3 pode ser usada como equivalente de K1?
Não. K3 é menadiona e não possui a cadeia fitila característica da filoquinona K1. As duas apresentam propriedades físico-químicas e redox diferentes.
Plantas produzem vitamina B12?
Plantas vasculares não possuem uma via conhecida de biossíntese de novo de cobalamina. Muitos organismos que dependem de B12 a obtêm de microrganismos produtores.
Se uma planta absorve B12, isso prova que ela precisa dela?
Não. A fortificação aeropônica de ervilha demonstrou absorção e translocação eficientes de B12, mas o objetivo e o resultado foram biofortificação do alimento, não demonstração de uma necessidade coenzimática da planta.
Referências
Akçay, M. 2025. The Effect of Cobalamin (Vitamin B12) Application on Some Growth, Biochemical Parameters and Pv-MATE14 Gene Expression Level in Bush Bean Plants Exposed to Heavy Metal CuSO4 Stress. Anadolu Journal of Agricultural Sciences, 40(3), 615-637. DOI: 10.7161/omuanajas.1618560.
Dorrell, R. G.; Nef, C.; Altan-Ochir, S.; Bowler, C.; Smith, A. G. 2024. Presence of vitamin B12 metabolism in the last common ancestor of land plants. Philosophical Transactions of the Royal Society B, 379, 20230354. DOI: 10.1098/rstb.2023.0354.
Eldridge, B. M. et al. 2026. Addressing Vitamin B12 deficiency through aeroponic fortification of a salad crop, Pisum sativum. Communications Biology. DOI: 10.1038/s42003-026-09764-y.
Gross, J. et al. 2006. A plant locus essential for phylloquinone (vitamin K1) biosynthesis originated from a fusion of four eubacterial genes. Journal of Biological Chemistry, 281, 17189-17196. DOI: 10.1074/jbc.M601754200.
Jiadkong, K.; Fauzia, A. N.; Yamaguchi, N.; Ueda, A. 2024. Exogenous riboflavin (vitamin B2) application enhances salinity tolerance through the activation of its biosynthesis in rice seedlings under salinity stress. Plant Science, 339, 111929. DOI: 10.1016/j.plantsci.2023.111929.
Keshavarz, H.; Sadegh-Ghol Moghadam, R. 2017. Seed priming with cobalamin (vitamin B12) provides significant protection against salinity stress in the common bean. Rhizosphere, 3, 143-149. DOI: 10.1016/j.rhisph.2017.04.010.
Kozuleva, M. A. et al. 2021. Phylloquinone is the principal Mehler reaction site within photosystem I in high light. Plant Physiology, 186, 1848-1858. DOI: 10.1093/plphys/kiab221.
Kruk, J.; Nowicka, B.; Szymańska, R.; Gabruk, M. 2026. Vitamin K in photosynthetic organisms. Planta, 264, 91. DOI: 10.1007/s00425-026-05122-8.
Nie, S.; Xu, H. 2016. Riboflavin-Induced Disease Resistance Requires the Mitogen-Activated Protein Kinases 3 and 6 in Arabidopsis thaliana. PLOS ONE, 11, e0153175. DOI: 10.1371/journal.pone.0153175.
Sayer, A. P. et al. 2024. Conserved cobalamin acquisition protein 1 is essential for vitamin B12 uptake in both Chlamydomonas and Phaeodactylum. Plant Physiology, 194, 698-714. DOI: 10.1093/plphys/kiad564.
Tsitsekian, D. et al. 2026. Developmental and Stress-Mediated Transcriptional Shifts in Riboflavin Metabolism Pathway in Arabidopsis. Genes, 17, 16. DOI: 10.3390/genes17010016.
Zhang, S. et al. 2009. Riboflavin-induced Priming for Pathogen Defense in Arabidopsis thaliana. Journal of Integrative Plant Biology, 51, 167-174.
Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.