Neste artigo37 tópicos
- A raiz não responde apenas à quantidade de nitrogênio no solo. Ela percebe a forma, a concentração e a localização do N e reorganiza seu crescimento de acordo com essas informações
- Arquitetura radicular é muito mais do que quantidade de raiz
- Nitrato e amônio não entregam a mesma informação para a raiz
- Como a raiz percebe o nitrato?
- A auxina traduz a informação nutricional em crescimento
- PIN2 mostra como essa resposta pode começar em poucas horas
- E o amônio?
- A parte aérea também participa da decisão
- Da planta-modelo para uma lavoura existe uma distância importante
- No solo, nitrato e amônio também não ficam parados
- Implicações práticas: o que isso muda no manejo do nitrogênio?
- Forma
- Localização
- Concentração
- Tempo
- Estado da planta
- Existe uma relação ideal entre nitrato e amônio?
- Mais raiz nem sempre é melhor
- Como avaliar arquitetura radicular de maneira mais consistente?
- Erros comuns de interpretação
- “Nitrato faz a raiz crescer, amônio reduz”
- “Mais raízes laterais significam um sistema melhor”
- “Amônio é tóxico para as raízes”
- “Nitrato sempre aprofunda a raiz”
- “A raiz responde apenas ao nitrogênio presente ao redor dela”
- “A mesma dose de N produz a mesma resposta”
- “O que acontece em Arabidopsis acontece igual no milho”
- Conclusão
- Em cinco pontos
- Perguntas frequentes
- Nitrato produz mais raízes que amônio?
- O amônio sempre prejudica as raízes?
- Por que a auxina é tão importante nessa resposta?
- A parte aérea consegue controlar a absorção de N pelas raízes?
- Existe uma relação ideal de nitrato e amônio?
- Mais raiz significa maior eficiência de uso do nitrogênio?
- Referências
A raiz não responde apenas à quantidade de nitrogênio no solo. Ela percebe a forma, a concentração e a localização do N e reorganiza seu crescimento de acordo com essas informações
Quando pensamos no efeito do nitrogênio sobre uma planta, normalmente olhamos primeiro para a parte aérea. Folhas maiores, maior teor de clorofila, crescimento vegetativo e acúmulo de biomassa são respostas fáceis de perceber.
Nas raízes, porém, acontece algo igualmente importante e muito menos visível.
O sistema radicular muda de forma.
Uma raiz pode se alongar mais, aumentar sua ramificação, produzir novas raízes laterais, alterar a densidade de pelos radiculares ou reduzir o crescimento de determinadas regiões.
E essas mudanças não dependem apenas da quantidade total de nitrogênio disponível.
Para a planta, nitrato, NO₃⁻, e amônio, NH₄⁺, não são simplesmente duas fontes equivalentes do mesmo elemento.
Eles diferem em mobilidade no solo, interação com as cargas, efeito sobre o pH da rizosfera, custo metabólico e, principalmente, na maneira como são percebidos pela planta.
Em experimentos com Arabidopsis thaliana, uma região localizada contendo nitrato favoreceu principalmente o alongamento de raízes laterais que já existiam. Quando o nutriente localizado era amônio, a resposta mudou: aumentaram a iniciação de novas raízes laterais e a ramificação de ordens superiores.
Isso não aconteceu simplesmente porque uma das regiões forneceu mais N. Estudos com nitrogênio marcado mostraram que havia um componente de sinalização envolvido.
A raiz estava, de fato, interpretando o ambiente.
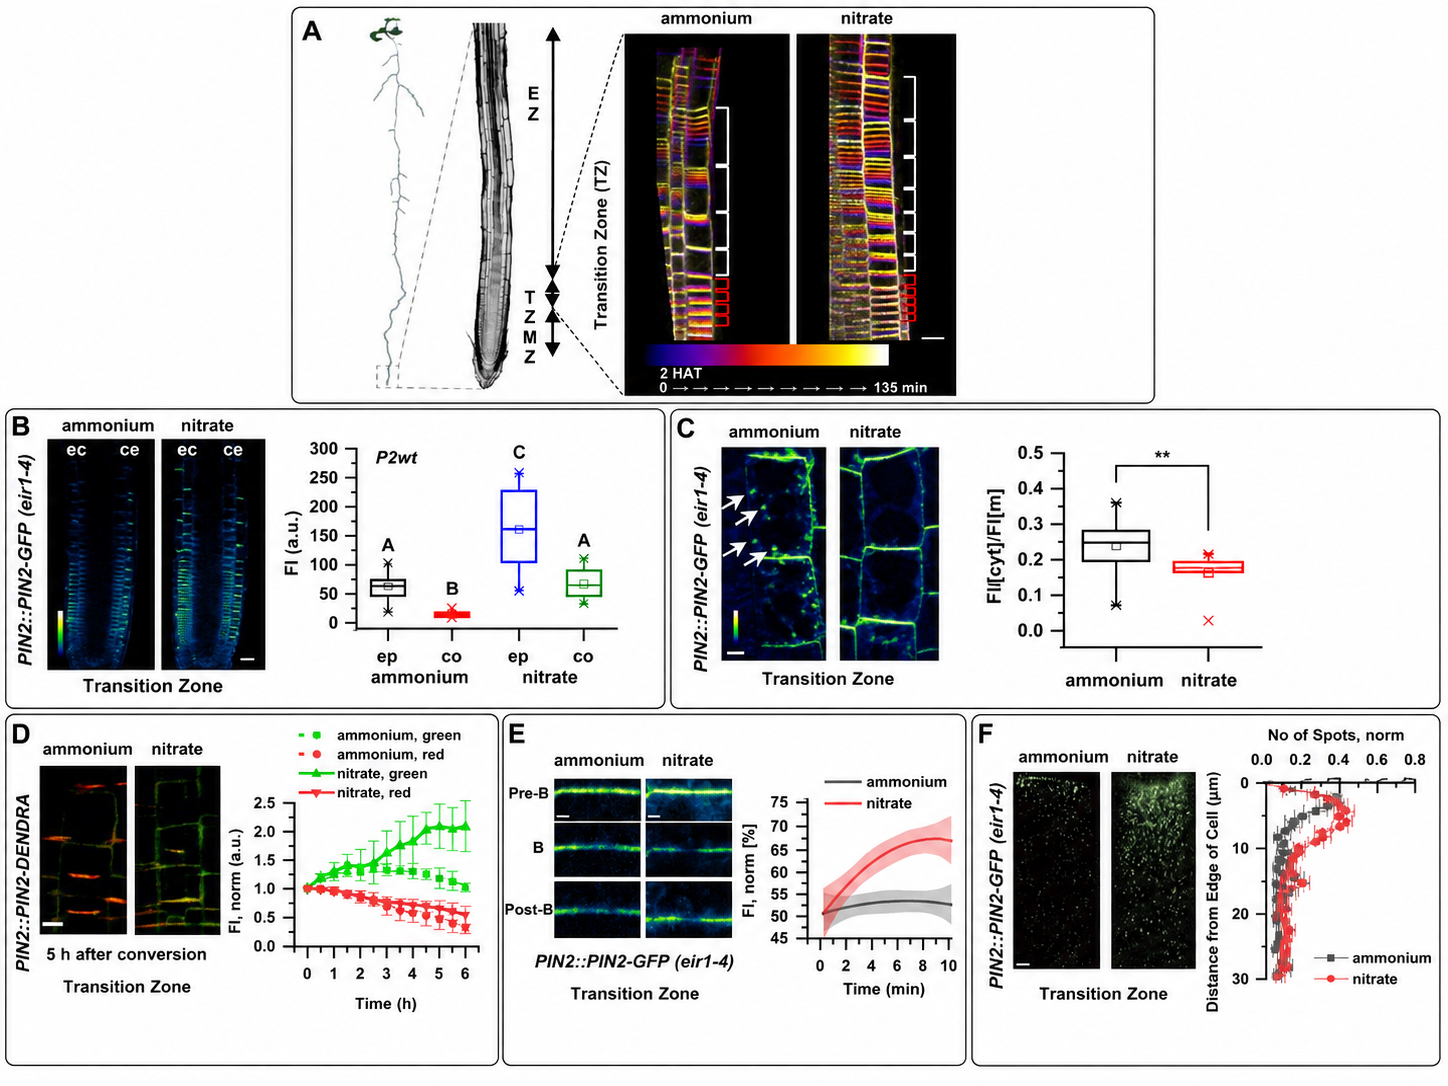
Outro experimento revelou quão rápida pode ser essa resposta. Plantas inicialmente cultivadas com amônio passaram a crescer mais rapidamente quando receberam nitrato. Em poucas horas, o nitrato modificou a distribuição da auxina entre diferentes tecidos da raiz por meio do transportador PIN2, reorganizando divisão e alongamento celular.
Mais recentemente, ficou claro que essa decisão não pertence apenas às raízes.
O estado de nitrato da parte aérea também é percebido. A quantidade de NO₃⁻ acumulada nos tecidos aéreos modifica a produção de citocininas e altera a expressão, nas raízes, de genes relacionados à aquisição e assimilação de nitrogênio.
A arquitetura radicular é, portanto, resultado de uma conversa contínua entre solo, raiz e parte aérea.
A pergunta já não é apenas quanto nitrogênio existe.
É onde ele está, em qual forma aparece e quanto a planta ainda precisa dele.
Arquitetura radicular é muito mais do que quantidade de raiz
Quando um experimento mostra que determinado tratamento produziu “mais raiz”, a primeira pergunta deveria ser: mais o quê?
A arquitetura do sistema radicular inclui características diferentes:
- comprimento dos eixos principais;
- profundidade;
- ângulo de crescimento;
- número de raízes laterais;
- comprimento dessas laterais;
- ramificações de segunda e terceira ordem;
- densidade de raízes finas;
- formação de pelos radiculares;
- distribuição das raízes ao longo do perfil.
Duas plantas podem ter praticamente a mesma massa seca de raízes e explorar volumes de solo completamente diferentes.
Uma delas pode concentrar grande quantidade de raízes finas próximo à superfície. Outra pode investir em poucos eixos que alcançam maior profundidade.
Também existe uma diferença importante entre formar uma raiz lateral e fazer essa raiz crescer.
A nova lateral começa com a definição de células do periciclo que darão origem ao primórdio. Esse primórdio se desenvolve, atravessa os tecidos externos da raiz e emerge. Só depois começa a fase de alongamento propriamente dita.
Um tratamento pode aumentar o número de primórdios sem aumentar o comprimento final das raízes.
Outro pode praticamente não alterar a iniciação, mas fazer as raízes já existentes crescerem muito mais.
Essa diferença é fundamental para entender a resposta ao nitrogênio.
Nitrato e amônio não entregam a mesma informação para a raiz
Do ponto de vista metabólico, os caminhos acabam convergindo.
O nitrato absorvido precisa ser reduzido a nitrito e depois a amônio. O NH₄⁺, por sua vez, pode ser incorporado ao metabolismo nitrogenado principalmente pelo sistema GS-GOGAT.
Mas a planta começa a responder muito antes de todo esse nitrogênio ser transformado em aminoácidos e proteínas.
É aqui que aparece a função sinalizadora.
Em Arabidopsis, o padrão experimental mais consistente é que uma região enriquecida com nitrato favoreça principalmente o alongamento das raízes laterais presentes naquele local.
O amônio localizado, em concentrações compatíveis com o funcionamento da planta, pode estimular a iniciação de novas laterais e aumentar a ramificação.
Não é uma regra absoluta, e a concentração muda completamente a resposta.
Baixas ou moderadas disponibilidades de N podem estimular a exploração do solo. Uma deficiência severa restringe o crescimento. Em outro extremo, elevada disponibilidade sistêmica pode diminuir o investimento em raízes porque a planta já dispõe de N suficiente.
Com o amônio ocorre algo ainda mais evidente.
Uma concentração localizada pode estimular ramificação. Mas exposição elevada ou fornecimento exclusivamente amoniacal em condições desfavoráveis pode reduzir a raiz principal, diminuir o tamanho do meristema e limitar o alongamento.
Portanto, a frase “amônio aumenta raízes laterais” precisa ser usada com cuidado.
Uma planta pode produzir mais laterais e ainda assim terminar com um sistema radicular menor.
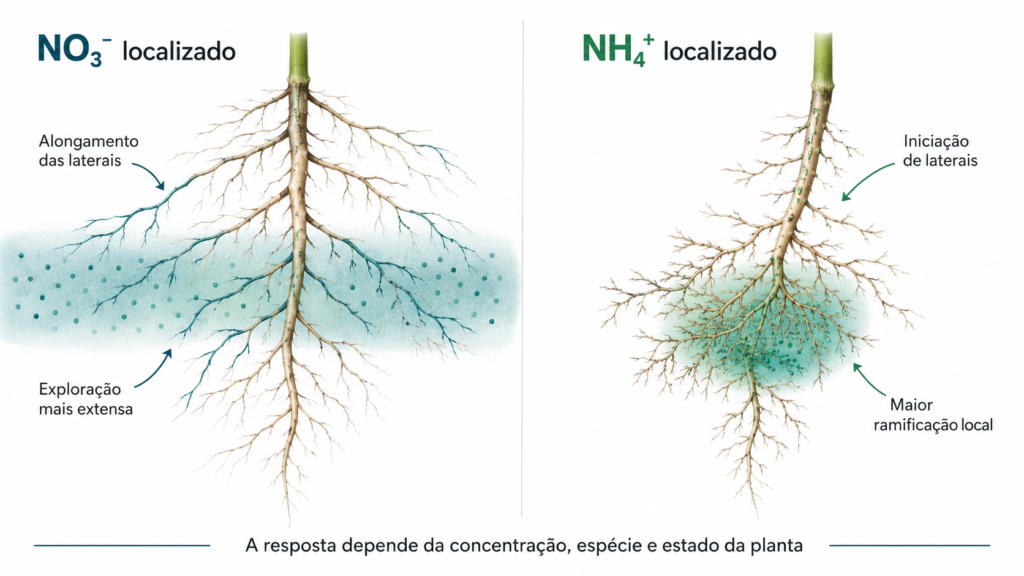
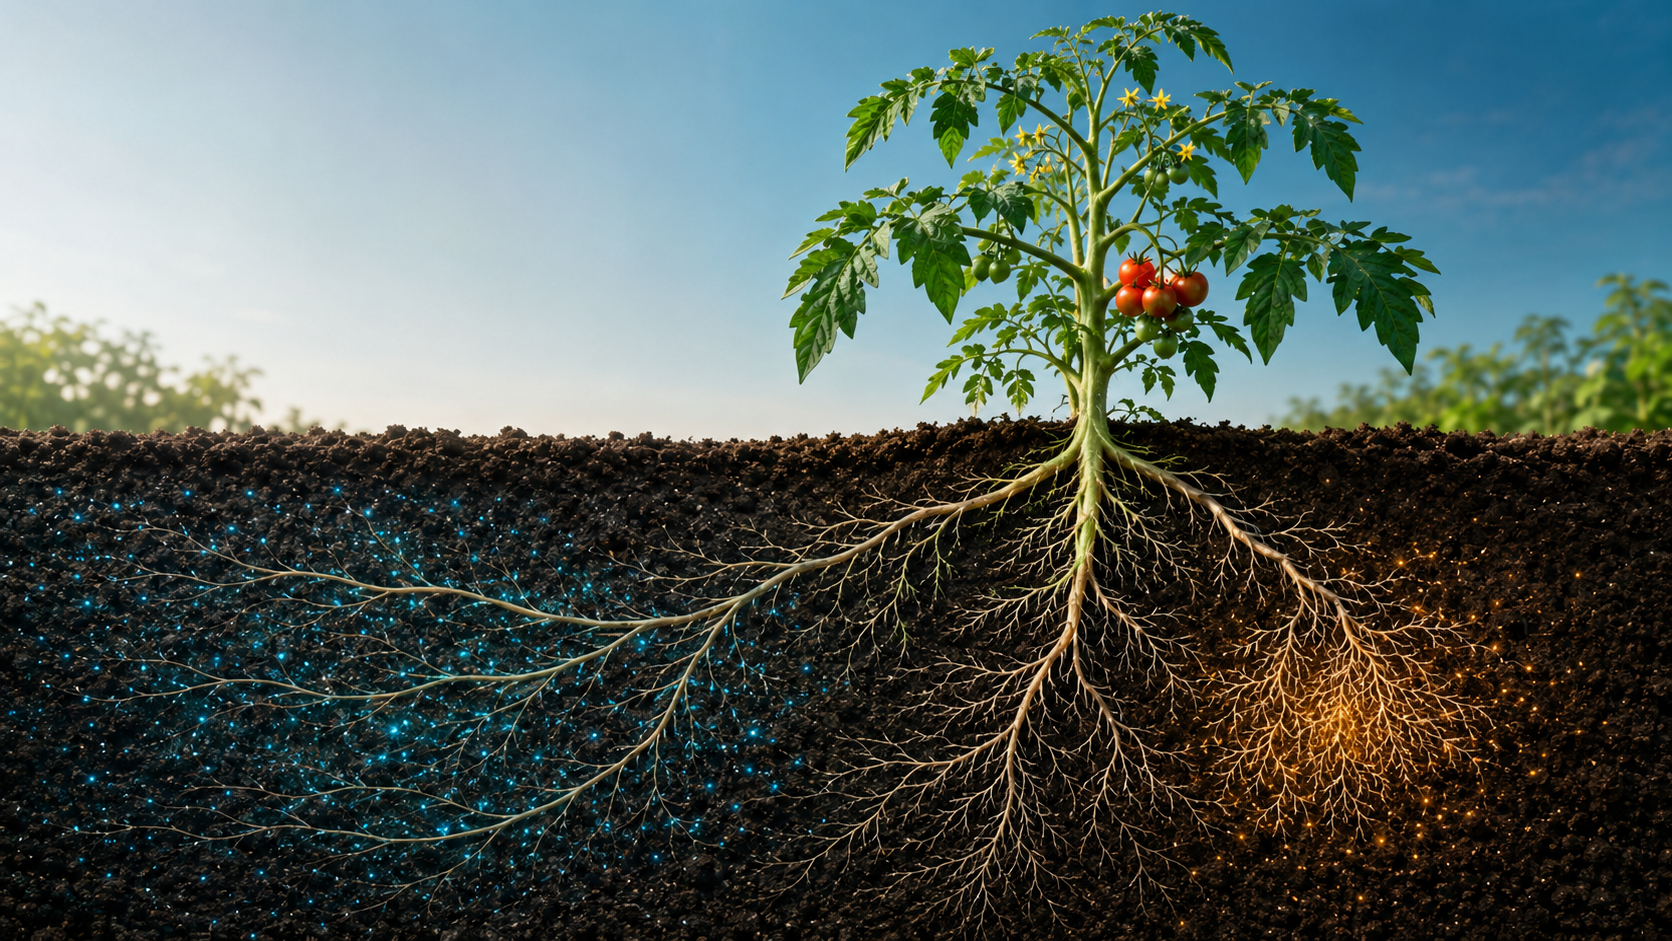
Figura 1. Nitrato e amônio podem direcionar estratégias radiculares diferentes. Em condições localizadas e não tóxicas, o nitrato tende a favorecer o crescimento de raízes laterais existentes, enquanto o amônio pode favorecer iniciação e ramificação. A intensidade e até o sentido da resposta dependem da concentração, da espécie e do estado nutricional da planta.
Como a raiz percebe o nitrato?
Entre as formas de nitrogênio, o nitrato possui uma das redes de percepção mais bem conhecidas.
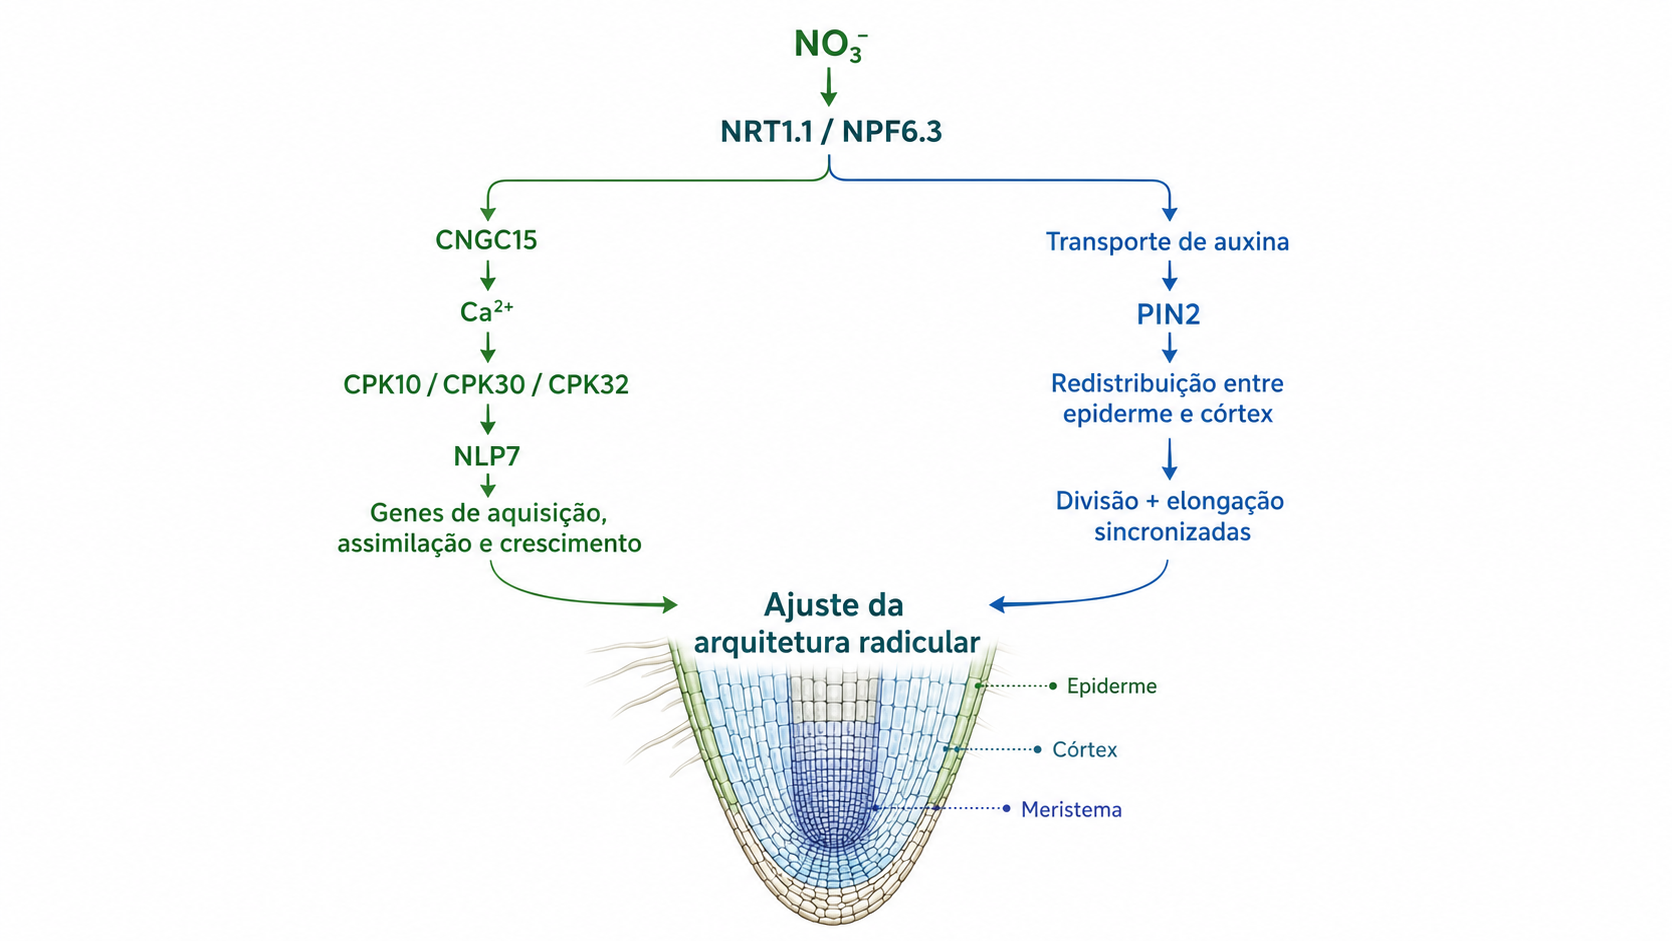
Uma proteína central nesse processo é a NRT1.1, também chamada NPF6.3 ou CHL1.
Ela é interessante porque não funciona apenas como transportadora de nitrato.
Também participa da percepção do nutriente e, em determinadas condições, interfere no transporte de auxina.
Por isso, costuma ser chamada de transceptor, uma combinação entre transportador e receptor.
Quando a disponibilidade de nitrato muda, NRT1.1 participa da formação de sinais intracelulares de cálcio em conjunto com o canal CNGC15.
O Ca²⁺ funciona então como mensageiro.
Proteínas quinases como CPK10, CPK30 e CPK32 respondem a essa alteração e atuam sobre fatores de transcrição da família NLP.
Entre eles está NLP7, que ocupa uma posição central na resposta ao nitrato.
Essa sequência permite que uma mudança na quantidade de NO₃⁻ fora da célula seja convertida rapidamente em mudança na expressão de genes relacionados a:
- absorção;
- transporte;
- assimilação;
- metabolismo;
- crescimento;
- desenvolvimento radicular.
Ou seja, antes mesmo de o N aparecer em uma nova proteína, sua presença já começou a modificar o comportamento da raiz.
A auxina traduz a informação nutricional em crescimento
Perceber nitrato não basta.
A raiz ainda precisa transformar essa informação em uma decisão de crescimento.
A auxina é uma das principais responsáveis por essa etapa.
E, nesse caso, não importa apenas quanto hormônio existe.
Importa onde ele está.
O desenvolvimento de uma nova raiz lateral depende de regiões específicas de acúmulo de auxina. O alongamento da raiz principal também depende de sua distribuição entre o meristema, a zona de transição e a zona de elongação.
Essa distribuição é controlada por transportadores, entre eles proteínas da família PIN.
O nitrato consegue interferir diretamente nesse sistema.
Sob baixa disponibilidade de NO₃⁻, NRT1.1 pode contribuir para retirar auxina de primórdios e raízes laterais jovens, limitando seu desenvolvimento.
Quando uma região passa a oferecer mais nitrato, essa restrição diminui.
A auxina pode permanecer em maior concentração na lateral e sustentar seu crescimento.
A lógica é bastante interessante.
A planta não precisa fazer todo o sistema radicular crescer indiscriminadamente.
Ela consegue favorecer justamente as raízes que encontraram uma região nutricionalmente mais interessante.
PIN2 mostra como essa resposta pode começar em poucas horas
O estudo de Ötvös e colaboradores permitiu acompanhar essa resposta quase em tempo real.
As plantas foram inicialmente mantidas com NH₄⁺. Depois, parte delas foi transferida para uma solução contendo NO₃⁻.
A diferença apareceu rapidamente.
Seis horas depois, as raízes que receberam nitrato já apresentavam maior crescimento.
Mas o resultado mais interessante não estava simplesmente no comprimento final.
Sob amônio, células da epiderme começavam a se alongar antes das células do córtex. Como esses tecidos estão lado a lado, isso criava um crescimento menos sincronizado.
Quando o nitrato foi fornecido, essa dinâmica mudou.
Mais células permaneceram durante algum tempo na região de transição, a atividade proliferativa foi reorganizada e epiderme e córtex passaram a apresentar um padrão de crescimento mais coordenado.
No centro dessa resposta estava o PIN2, um transportador de auxina.
O nitrato não aumentou de maneira relevante a transcrição do gene PIN2.
A regulação ocorreu na própria proteína.
Houve mudança em seu estado de fosforilação, especialmente no resíduo Ser439, maior presença de PIN2 na membrana e alteração de sua distribuição lateral.
Com isso, o fluxo de auxina entre epiderme e córtex também mudou.
O que vemos dias depois como uma raiz maior começa, portanto, muito antes, com alterações na localização de proteínas e na distribuição hormonal entre algumas fileiras de células.
E o amônio?
A sinalização por NH₄⁺ é menos bem resolvida que a de nitrato, mas alguns pontos estão claros.
O transportador AMT1;3 tem participação importante na resposta à disponibilidade localizada de amônio.
Quando esse transportador é removido geneticamente, a estimulação da ramificação provocada pelo NH₄⁺ é fortemente reduzida.
Isso sugere que o sistema não responde apenas à quantidade total de N absorvida.
Por outro lado, a própria planta precisa controlar cuidadosamente a entrada de amônio.
NH₄⁺ em excesso pode representar um problema porque sua assimilação exige disponibilidade de esqueletos de carbono e precisa ser compatível com o equilíbrio energético e iônico da célula.
Quando essa capacidade é ultrapassada, podem ocorrer:
- acidificação da região próxima às raízes;
- maior demanda por carbono;
- redução do meristema;
- menor alongamento;
- mudanças na distribuição de auxina;
- redução do crescimento da raiz principal.
O resultado, portanto, depende da intensidade da exposição.
Uma quantidade localizada e adequada pode funcionar como sinal para aumentar a ramificação naquela região.
Uma exposição elevada pode fazer exatamente o contrário sobre o crescimento total.
A parte aérea também participa da decisão
A raiz consegue perceber o que existe ao seu redor.
Mas existe outra informação que ela precisa conhecer:
A planta ainda precisa de mais nitrogênio?
Imagine uma raiz que encontra uma região rica em nitrato.
Construir novas raízes, aumentar transportadores e sustentar a absorção custa carbono e energia.
Se a parte aérea já possui N suficiente, continuar investindo intensamente nessa aquisição pode não ser vantajoso.
É por isso que a resposta ao nitrogênio possui uma dimensão sistêmica.
Raiz e parte aérea trocam informações continuamente.
As citocininas fazem parte dessa comunicação.
A presença de nitrato pode estimular sua produção, e algumas formas são transportadas entre os órgãos.
O trabalho de Monden e colaboradores trouxe uma peça interessante para esse sistema.
Os pesquisadores utilizaram microenxertia para separar, experimentalmente, o estado de nitrato da parte aérea daquele existente nas raízes.
Quando o nitrato se acumulou na parte aérea, aumentou a expressão de IPT3, uma enzima importante na biossíntese de citocininas do tipo iP. Essas citocininas são móveis no floema.
Ao mesmo tempo, houve mudanças na expressão de genes relacionados ao metabolismo do nitrogênio nas raízes.
Genes associados à deficiência de N e à aquisição de nitrato em alta afinidade passaram a responder ao estado nitrogenado da parte aérea.
É importante não extrapolar esse resultado.
O estudo não mostrou que IPT3, sozinho, redesenhou a arquitetura radicular. A biomassa das raízes não apresentou uma grande mudança entre os tratamentos.
O que ele mostrou é algo anterior: o nitrato presente na parte aérea participa da programação molecular que informa às raízes quanto esforço ainda deve ser direcionado à aquisição de N.
Essa distinção é importante.
A raiz não lê apenas o solo.
Ela também recebe informações da própria planta.

Da planta-modelo para uma lavoura existe uma distância importante
Boa parte desses mecanismos foi descoberta em Arabidopsis thaliana.
Isso não diminui sua importância.
Sem plantas-modelo seria muito mais difícil identificar NRT1.1, PIN2, AMT1;3, NLP7 e grande parte das redes que conhecemos hoje.
O problema aparece quando o mecanismo é transformado diretamente em recomendação de campo.
Milho, por exemplo, não possui apenas uma raiz principal com algumas laterais.
Ao longo do desenvolvimento aparecem diferentes classes:
- raiz primária;
- raízes seminais;
- raízes nodais;
- raízes de coroa;
- raízes de suporte;
- laterais associadas a cada uma delas.
Essas classes não respondem necessariamente da mesma maneira ao nitrato.
Uma raiz jovem, uma raiz nodal e uma raiz de suporte podem ter plasticidades completamente diferentes.
O mesmo vale para o genótipo.
Em trigo, existem cultivares capazes de modificar fortemente ângulo, comprimento e densidade radicular quando o N se torna limitante, enquanto outras apresentam resposta muito menor.
Portanto, não existe uma única arquitetura de resposta ao nitrogênio.
Existe um conjunto de mecanismos que cada espécie e genótipo utiliza de maneira própria.
No solo, nitrato e amônio também não ficam parados
Em laboratório é possível construir um tratamento no qual uma raiz encontra exatamente 2,5 mM de NH₄⁺ ou 10 mM de NO₃⁻.
No campo, esse ambiente está mudando o tempo inteiro.
O amônio pode:
- ser adsorvido às cargas do solo;
- ser absorvido pelas raízes;
- ser imobilizado pelos microrganismos;
- ser convertido em nitrato.
O nitrato pode:
- acompanhar o movimento da água;
- deslocar-se no perfil;
- ser absorvido;
- ser imobilizado;
- ser perdido em condições favoráveis à desnitrificação.
Isso significa que a forma aplicada no fertilizante não é necessariamente a forma que a raiz encontrará alguns dias depois.
A ureia é um bom exemplo.
Ela é aplicada como uma molécula não iônica, mas sua hidrólise gera NH₄⁺, que posteriormente pode ser nitrificado.
O ambiente nitrogenado muda com:
- temperatura;
- umidade;
- pH;
- aeração;
- textura;
- atividade microbiana.
Existe ainda o efeito da própria planta.
A absorção predominante de amônio tende a acidificar a rizosfera. A absorção de nitrato pode deslocar o pH em sentido oposto.
Logo, parte da resposta observada não vem apenas do íon em si, mas também do ambiente químico que se forma ao redor da raiz.
Implicações práticas: o que isso muda no manejo do nitrogênio?
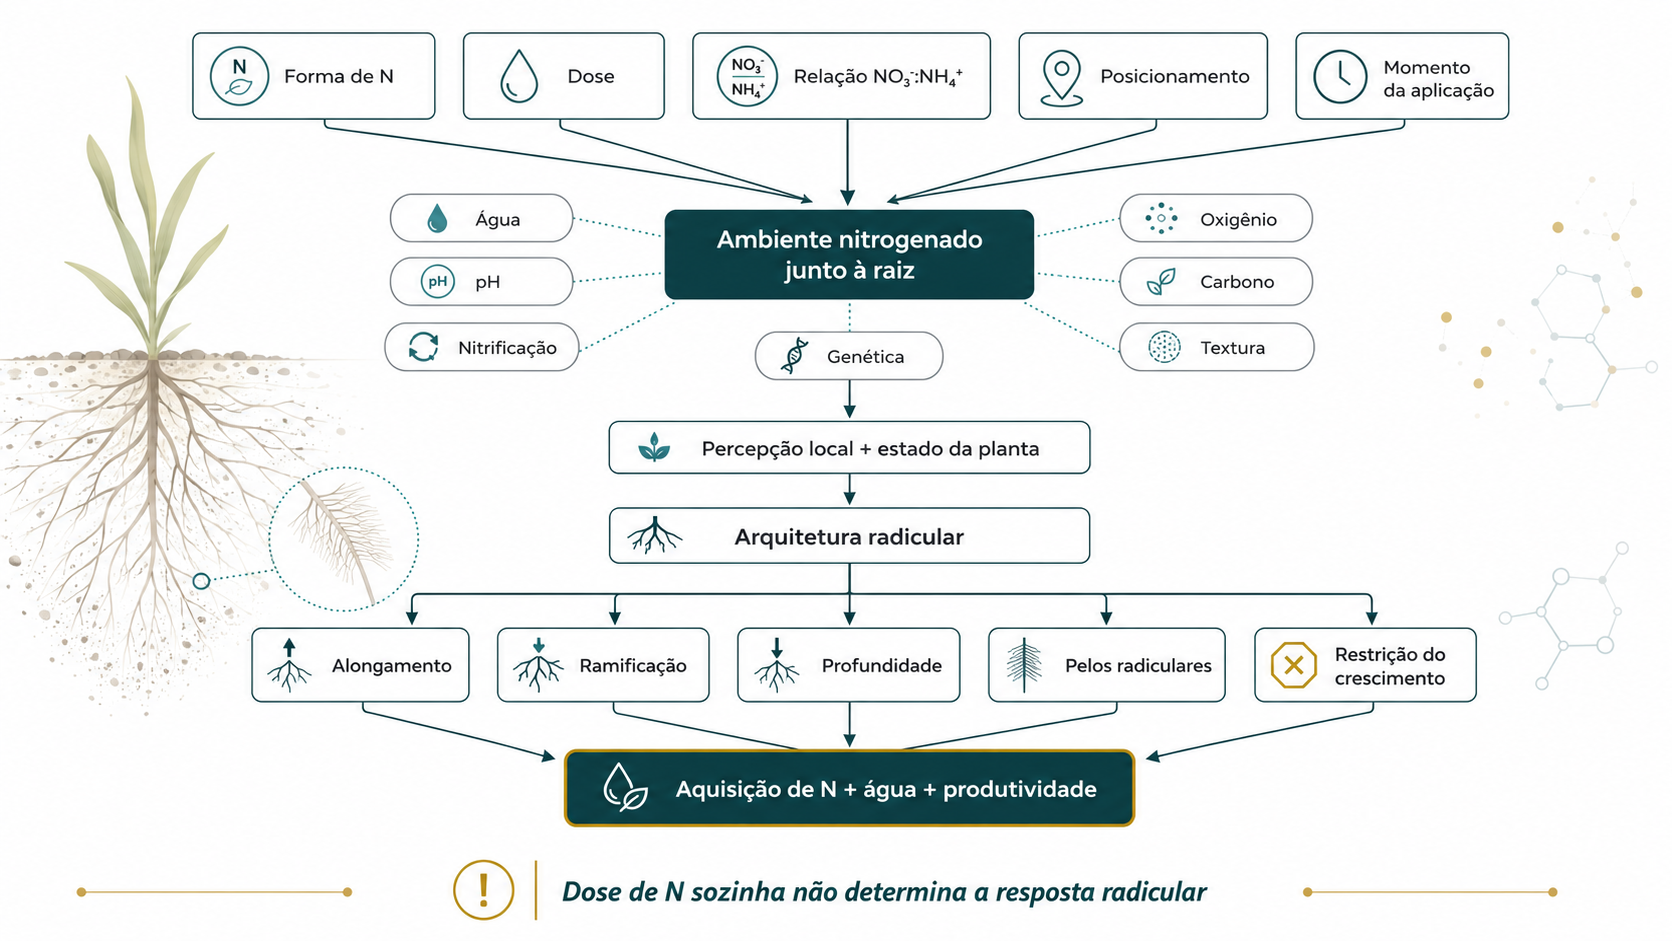
Talvez a principal mudança seja abandonar a ideia de que a dose por hectare descreve completamente o tratamento nitrogenado.
Não descreve.
Duas aplicações de 100 kg de N por hectare podem produzir ambientes radiculares muito diferentes.
É preciso considerar pelo menos cinco dimensões.
Forma
Quanto do N chegará inicialmente como nitrato, amônio ou ureia?
Localização
O fertilizante foi distribuído em toda a área ou concentrado em uma faixa? Está próximo da linha? Em qual profundidade? Está dentro do volume de solo realmente molhado pela irrigação?
Concentração
A dose por hectare não informa a concentração que uma raiz encontra. A mesma quantidade de fertilizante distribuída em 20 centímetros de solo ou concentrada em uma faixa de poucos centímetros produz ambientes completamente diferentes.
Tempo
A composição muda depois da aplicação. Ureia gera amônio. Amônio pode gerar nitrato. A raiz não encontra a mesma solução no primeiro, quinto e décimo quinto dia.
Estado da planta
Uma planta deficiente em N tende a responder de maneira diferente de outra que já apresenta elevada suficiência. E essa informação não está apenas na raiz. A parte aérea participa dessa regulação.
Existe uma relação ideal entre nitrato e amônio?
Não de maneira universal.
Uma proporção que funciona bem em determinado sistema pode ser inadequada em outro.
A resposta depende de espécie, genótipo, estádio, temperatura, pH, oxigenação, disponibilidade de carbono, atividade microbiana, capacidade de nitrificação e concentração total de N.
Misturas de fontes podem evitar alguns dos extremos observados em condições exclusivamente nítricas ou amoniacais.
Mas transformar isso em uma relação NO₃⁻:NH₄⁺ fixa para qualquer cultura seria ir além do que a fisiologia sustenta.
A pergunta correta não é “qual é a proporção ideal de nitrato e amônio?”, e sim “qual ambiente nitrogenado queremos construir para esta cultura, nesta fase e neste sistema de produção?”
Mais raiz nem sempre é melhor
Essa talvez seja uma das implicações mais importantes.
Produzir raiz custa carbono.
Cada nova lateral precisa ser construída e depois mantida metabolicamente.
Um sistema extremamente ramificado pode ser vantajoso para explorar uma região rica em nutrientes, mas pode se tornar caro se estiver crescendo em um volume de solo que oferece pouco retorno.
Do outro lado, uma raiz profunda pode acessar água e nitrato em camadas inferiores, mas não necessariamente explorar de maneira eficiente um nutriente localizado na superfície.
Portanto, o objetivo do manejo não deveria ser simplesmente aumentar a massa de raízes.
O objetivo é construir um sistema radicular funcional.
Uma arquitetura capaz de encontrar água e nutrientes no momento necessário e com um custo metabólico compatível com a produtividade da parte aérea.
Como avaliar arquitetura radicular de maneira mais consistente?
Primeiro, é preciso parar de resumir o sistema a “mais” ou “menos” raiz.
Um experimento bem conduzido deveria separar:
- comprimento total;
- profundidade;
- ângulo;
- número de laterais;
- comprimento das laterais;
- densidade de ramificação;
- raízes de ordens superiores;
- superfície absorvente;
- pelos radiculares.
O tempo de avaliação também importa.
Sinais de Ca²⁺ podem mudar em minutos.
A distribuição de PIN2 e auxina pode mudar em horas.
Primórdios radiculares aparecem depois.
Alterações perceptíveis na exploração do perfil exigem ainda mais tempo.
Uma avaliação realizada apenas no final mistura todas essas etapas.
Por fim, é preciso avaliar função.
Uma arquitetura diferente é agronomicamente relevante quando melhora alguma coisa:
- aquisição de N;
- absorção de água;
- exploração de outros nutrientes;
- manutenção do crescimento;
- eficiência no uso do N;
- produtividade.
Sem essa conexão, a imagem de uma raiz maior pode ser biologicamente interessante, mas agronomicamente pouco informativa.
Erros comuns de interpretação
“Nitrato faz a raiz crescer, amônio reduz”
É simples demais. Nitrato pode favorecer alongamento, enquanto amônio localizado pode favorecer iniciação e ramificação. Concentração e contexto mudam a resposta.
“Mais raízes laterais significam um sistema melhor”
Não necessariamente. O número de laterais pode aumentar enquanto comprimento, profundidade ou biomassa total diminuem.
“Amônio é tóxico para as raízes”
Pode se tornar tóxico ou inibitório em determinadas concentrações e condições, mas também funciona como fonte de N e pode estimular respostas localizadas.
“Nitrato sempre aprofunda a raiz”
Não existe essa regra. Profundidade também depende de água, impedância física, posição do nutriente e genética.
“A raiz responde apenas ao nitrogênio presente ao redor dela”
Não. O estado nitrogenado da parte aérea participa da regulação sistêmica da aquisição de N.
“A mesma dose de N produz a mesma resposta”
Forma, localização, água, concentração e velocidade de transformação podem tornar duas doses iguais fisiologicamente muito diferentes.
“O que acontece em Arabidopsis acontece igual no milho”
Os mecanismos fornecem uma excelente estrutura de interpretação. A intensidade e a arquitetura final, porém, precisam ser validadas em cada espécie e classe de raiz.
Conclusão
O nitrogênio não funciona apenas como matéria-prima para proteínas, ácidos nucleicos e clorofila.
Ele também informa.
A raiz percebe onde existe N, em qual forma ele aparece e se aquela região merece maior investimento.
O nitrato possui uma rede de sinalização particularmente bem caracterizada. NRT1.1 participa de sua percepção, sinais de Ca²⁺ levam essa informação para dentro da célula e fatores como NLP7 reorganizam a expressão de genes ligados à aquisição e ao metabolismo.
Ao mesmo tempo, o nitrato interfere na auxina.
Mudanças em PIN2 alteram o fluxo hormonal entre tecidos vizinhos e conseguem modificar a dinâmica de crescimento da raiz em poucas horas.
O amônio produz outra resposta.
Em concentrações localizadas e adequadas, pode favorecer o aparecimento de novas raízes laterais. Em condições de exposição elevada, o custo metabólico e os efeitos sobre o ambiente radicular podem restringir o crescimento axial.
E nada disso acontece de forma isolada.
A parte aérea também acompanha seu estado de N. O nitrato acumulado nos tecidos aéreos modifica IPT3, citocininas e a expressão de genes relacionados à aquisição de nitrogênio nas raízes.
Quando levamos esse sistema para o campo, entram água, pH, nitrificação, textura, carbono, oxigênio, microbiologia e genética.
Por isso, manejar nitrogênio olhando apenas para quilogramas por hectare deixa uma parte importante da fisiologia fora da decisão.
A raiz não é apenas a porta de entrada do nitrogênio. Ela é um sistema sensorial que usa o N para decidir onde crescer, quanto ramificar e onde vale a pena investir carbono.
Em cinco pontos
- Nitrato e amônio fornecem N, mas são percebidos de maneira diferente pela planta.
- Nitrato localizado tende a favorecer o alongamento de raízes laterais existentes.
- Amônio localizado pode estimular iniciação e ramificação, mas concentrações elevadas podem restringir o crescimento.
- Auxina, NRT1.1, PIN2, cálcio, NLP7, AMT1;3 e citocininas fazem parte da ligação entre nutrição e arquitetura radicular.
- No campo, a resposta depende da combinação entre forma, dose, concentração, posição, água, pH, microbiologia, carbono e estado nutricional da planta.
Perguntas frequentes
Nitrato produz mais raízes que amônio?
Não necessariamente. Os dois podem modificar componentes diferentes da arquitetura. Nitrato tende a favorecer alongamento em determinadas condições, enquanto amônio pode favorecer ramificação localizada.
O amônio sempre prejudica as raízes?
Não. O efeito depende da dose, da localização, da cultura e da capacidade metabólica da planta. O problema aparece principalmente quando a exposição se torna excessiva ou o ambiente favorece desequilíbrios.
Por que a auxina é tão importante nessa resposta?
Porque a formação e o crescimento das raízes dependem de onde a auxina se acumula. O nitrogênio consegue modificar transportadores responsáveis por essa distribuição.
A parte aérea consegue controlar a absorção de N pelas raízes?
Sim. O estado nitrogenado da parte aérea participa de redes sistêmicas que ajustam a expressão de genes associados à aquisição e assimilação de N.
Existe uma relação ideal de nitrato e amônio?
Não existe uma proporção universal. A resposta depende da espécie, do estádio, do pH, da temperatura, da água, da oxigenação e da dinâmica do sistema de cultivo.
Mais raiz significa maior eficiência de uso do nitrogênio?
Não necessariamente. Importam posição, profundidade, atividade metabólica, superfície absorvente e o custo de manutenção do sistema.
Referências
DZIEWIT, K.; WABNIK, K.; SZAL, B.; PODGÓRSKA, A. Nitrogen sources modulate auxin transport to fine-tune root system architecture. Plant Cell Reports, v. 45, 2026.
LIMA, J. E.; KOJIMA, S.; TAKAHASHI, H.; VON WIRÉN, N. Ammonium triggers lateral root branching in Arabidopsis in an AMMONIUM TRANSPORTER1;3-dependent manner. The Plant Cell, v. 22, p. 3621-3633, 2010.
LIU, K. H. et al. Discovery of nitrate-CPK-NLP signalling in central nutrient-growth networks. Nature, v. 545, p. 311-316, 2017.
LIU, K. H. et al. NIN-like protein 7 transcription factor is a plant nitrate sensor. Science, v. 377, p. 1419-1425, 2022.
MONDEN, K. et al. Shoot nitrate status regulates Arabidopsis shoot growth and systemic transcriptional responses via shoot adenosine phosphate-isopentenyltransferase 3. Physiologia Plantarum, v. 177, e70542, 2025. DOI: 10.1111/ppl.70542.
ÖTVÖS, K. et al. Modulation of plant root growth by nitrogen source-defined regulation of polar auxin transport. The EMBO Journal, v. 40, e106862, 2021. DOI: 10.15252/embj.2020106862.
WANG, Y. Y. et al. A transceptor-channel complex couples nitrate sensing to calcium signaling in Arabidopsis. Molecular Plant, v. 14, p. 774-786, 2021.
YU, P. et al. Root type-specific reprogramming of maize pericycle transcriptomes by local high nitrate results in disparate lateral root branching patterns. Plant Physiology, v. 170, p. 1783-1798, 2016.
Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.