Neste artigo42 tópicos

Como o Mg conecta fotossíntese, energia, transporte de açúcares, nutrição e produtividade

Quando se fala em magnésio nas plantas, a primeira associação costuma ser imediata: clorofila.

Ela está correta, mas é incompleta.


O magnésio ocupa o centro da molécula de clorofila e, sem ele, a captura de energia luminosa fica comprometida. Entretanto, reduzir a importância do Mg a essa função esconde boa parte de sua relevância fisiológica.


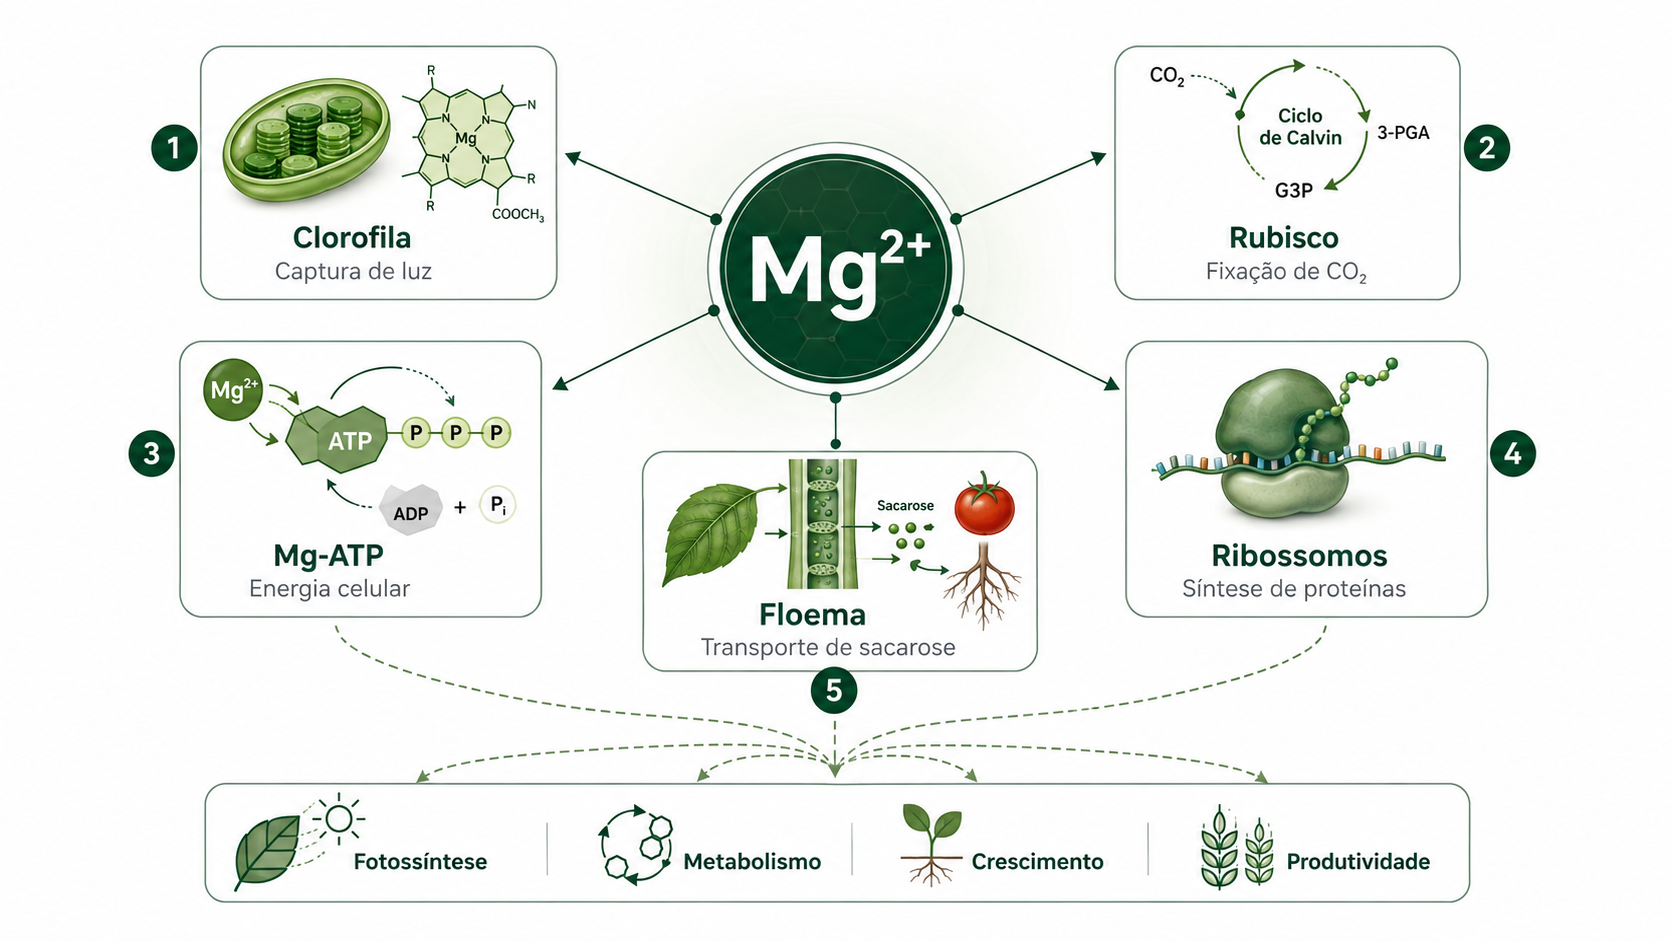
Dentro das células, Mg²⁺ participa da ativação de numerosas enzimas, estabiliza ribossomos, interage com ácidos nucleicos e transforma o ATP na forma efetivamente utilizada por grande parte das reações dependentes de energia. No cloroplasto, participa da ativação de enzimas do ciclo de Calvin. Nas folhas fonte, está ligado ao funcionamento do sistema que exporta sacarose pelo floema. Nos vacúolos, precisa ser armazenado e remobilizado para manter concentrações adequadas no citosol.


Essa diversidade ajuda a explicar uma característica importante da deficiência de magnésio: a planta pode entrar em desequilíbrio metabólico antes que apareça a clorose internerval clássica.


Experimentos com feijoeiro mostraram que a deficiência de Mg reduziu a exportação de sacarose pelo floema para apenas 10% a 20% daquela observada em plantas adequadamente nutridas. Quando o Mg foi novamente fornecido, a exportação de sacarose começou a se recuperar rapidamente.


Portanto, antes de a folha simplesmente “perder clorofila”, pode ocorrer um problema anterior: o carbono produzido deixa de ser distribuído adequadamente para raízes, frutos, sementes e tecidos jovens.


É isso que torna o magnésio particularmente interessante para a fisiologia e para o manejo nutricional.

O magnésio não participa apenas da captura de carbono. Ele ajuda a determinar se a energia e o carbono produzidos pela folha poderão ser utilizados e exportados para sustentar o crescimento da planta.

Neste artigo, você vai entender

  • por que o magnésio é muito mais do que o átomo central da clorofila;
  • como Mg²⁺ participa da fotossíntese, do ATP e da síntese de proteínas;
  • por que a deficiência pode comprometer o transporte de açúcares antes da clorose;
  • como o Mg é absorvido, transportado e armazenado;
  • por que potássio, cálcio, solo e disponibilidade de água modificam sua nutrição;
  • como a planta remobiliza Mg quando o suprimento se torna limitado;
  • por que a interpretação agronômica não deve depender apenas de relações Ca:Mg ou K:Mg;
  • como escolher entre correção do solo, fertirrigação e suplementação foliar.

O magnésio é importante porque está na clorofila?

Sim, mas essa é apenas uma de suas funções.


O átomo de Mg ocupa a região central da estrutura porfirínica da clorofila. Isso permite que o pigmento participe do processo de absorção de energia luminosa nos fotossistemas.


Entretanto, a fração de magnésio ligada à clorofila representa apenas parte do Mg existente nos tecidos. Grande quantidade permanece associada a proteínas, nucleotídeos, ribossomos ou distribuída entre citosol, cloroplastos, mitocôndrias e vacúolos.


Essa diferença é fundamental.


Uma planta pode apresentar alterações fisiológicas provocadas pela deficiência de Mg antes que a quantidade de clorofila caia o suficiente para produzir amarelecimento visível. Estudos com arroz confirmam que redução da fotossíntese, geração de espécies reativas de oxigênio, remobilização de Mg e degradação posterior da clorofila fazem parte de uma sequência regulada de resposta à deficiência.

Conceito-chave

A clorose é uma consequência visível da deficiência de magnésio, mas não necessariamente o primeiro processo fisiológico afetado.

Magnésio, ATP e metabolismo energético

Essa é provavelmente uma das funções menos lembradas do Mg no campo.

Quando se escreve ATP, é comum imaginar uma molécula funcionando isoladamente como a “moeda energética” da célula.

Na prática, grande parte das enzimas que utilizam ATP reconhece o complexo formado entre ATP e magnésio:

ATP + Mg²⁺ → Mg-ATP


O Mg neutraliza parcialmente as cargas negativas dos grupos fosfato e permite que a molécula seja reconhecida adequadamente pelas enzimas.

O complexo Mg-ATP participa de processos como:

  • funcionamento de ATPases;
  • fosforilação por quinases;
  • síntese de proteínas;
  • transporte ativo através de membranas;
  • síntese de ácidos nucleicos;
  • metabolismo de carboidratos;
  • manutenção de gradientes eletroquímicos.

O equilíbrio entre ATP, ADP e AMP também se relaciona à quantidade de Mg²⁺ livre. Nos compartimentos celulares, a adenilato quinase participa do equilíbrio:

2 ADP ⇌ ATP + AMP


Como as formas livres e complexadas com Mg participam desse sistema, alterações no estado energético da célula também modificam o pool de Mg²⁺ livre. Essa relação sustenta a hipótese de que o magnésio possui, além de funções estruturais e catalíticas, uma dimensão regulatória ligada ao estado energético celular.

O magnésio também sustenta a síntese de proteínas

Os ribossomos são estruturas ricas em RNA, portanto contêm numerosas cargas negativas provenientes dos grupos fosfato.

Mg²⁺ ajuda a neutralizar essas cargas e estabilizar a organização do RNA ribossômico e a associação das subunidades do ribossomo.

Quando a concentração de Mg se torna insuficiente, a estabilidade da maquinaria de tradução pode ser comprometida. Isso interfere diretamente na capacidade da célula de produzir novas proteínas e enzimas.

Esse mecanismo amplia o impacto da deficiência.

Uma planta com pouco Mg não enfrenta apenas um problema de pigmentação. Ela começa a comprometer:

energia + síntese de proteínas + fotossíntese + transporte de carbono.

Magnésio e fotossíntese: três funções diferentes

Dizer que o Mg “participa da fotossíntese” ainda é genérico demais.

Há pelo menos três dimensões importantes.

1. Formação da clorofila

A enzima Mg-quelatase insere Mg²⁺ na protoporfirina IX durante a biossíntese da clorofila.

Sem suprimento adequado, a formação e a manutenção do aparato pigmentário ficam comprometidas.

2. Ativação de enzimas de fixação de carbono

A Rubisco necessita de Mg²⁺ para adquirir sua conformação cataliticamente ativa após a carbamilação do sítio ativo.

O Mg também participa da atividade de outras enzimas do metabolismo fotossintético. Assim, a presença de clorofila não garante, sozinha, que o ciclo de Calvin esteja funcionando em sua capacidade adequada.

3. Organização e funcionamento do cloroplasto

O equilíbrio de Mg dentro do cloroplasto varia com luz, pH e estado energético. Transportadores específicos controlam sua compartimentalização, enquanto o elemento participa da organização das membranas e de diferentes processos fotoquímicos.

Por isso, deficiência de Mg pode reduzir a assimilação de CO₂ mesmo antes da destruição extensa da clorofila.

Figura 1. O magnésio participa da clorofila, da ativação da Rubisco, da formação do complexo Mg-ATP, da estabilidade dos ribossomos e do transporte de fotoassimilados. Sua deficiência, portanto, afeta simultaneamente diferentes níveis do metabolismo.

Um dos primeiros problemas pode estar no transporte de açúcares

Esse é um dos pontos mais importantes para compreender a deficiência de Mg.

A folha fotossintetiza e produz açúcares, mas esses compostos precisam ser exportados para os órgãos que consomem ou armazenam carbono.

Entre esses órgãos estão:

  • raízes;
  • meristemas;
  • flores;
  • frutos;
  • sementes;
  • tubérculos;
  • tecidos em expansão.

Em espécies que utilizam carregamento apoplástico do floema, H⁺-ATPases da membrana utilizam energia para criar um gradiente de prótons. Esse gradiente é aproveitado pelos sistemas responsáveis pela entrada de sacarose no complexo elemento crivado-célula companheira.

Como essas ATPases dependem funcionalmente de Mg-ATP, uma limitação de magnésio pode comprometer esse sistema.

E os resultados experimentais são muito interessantes.

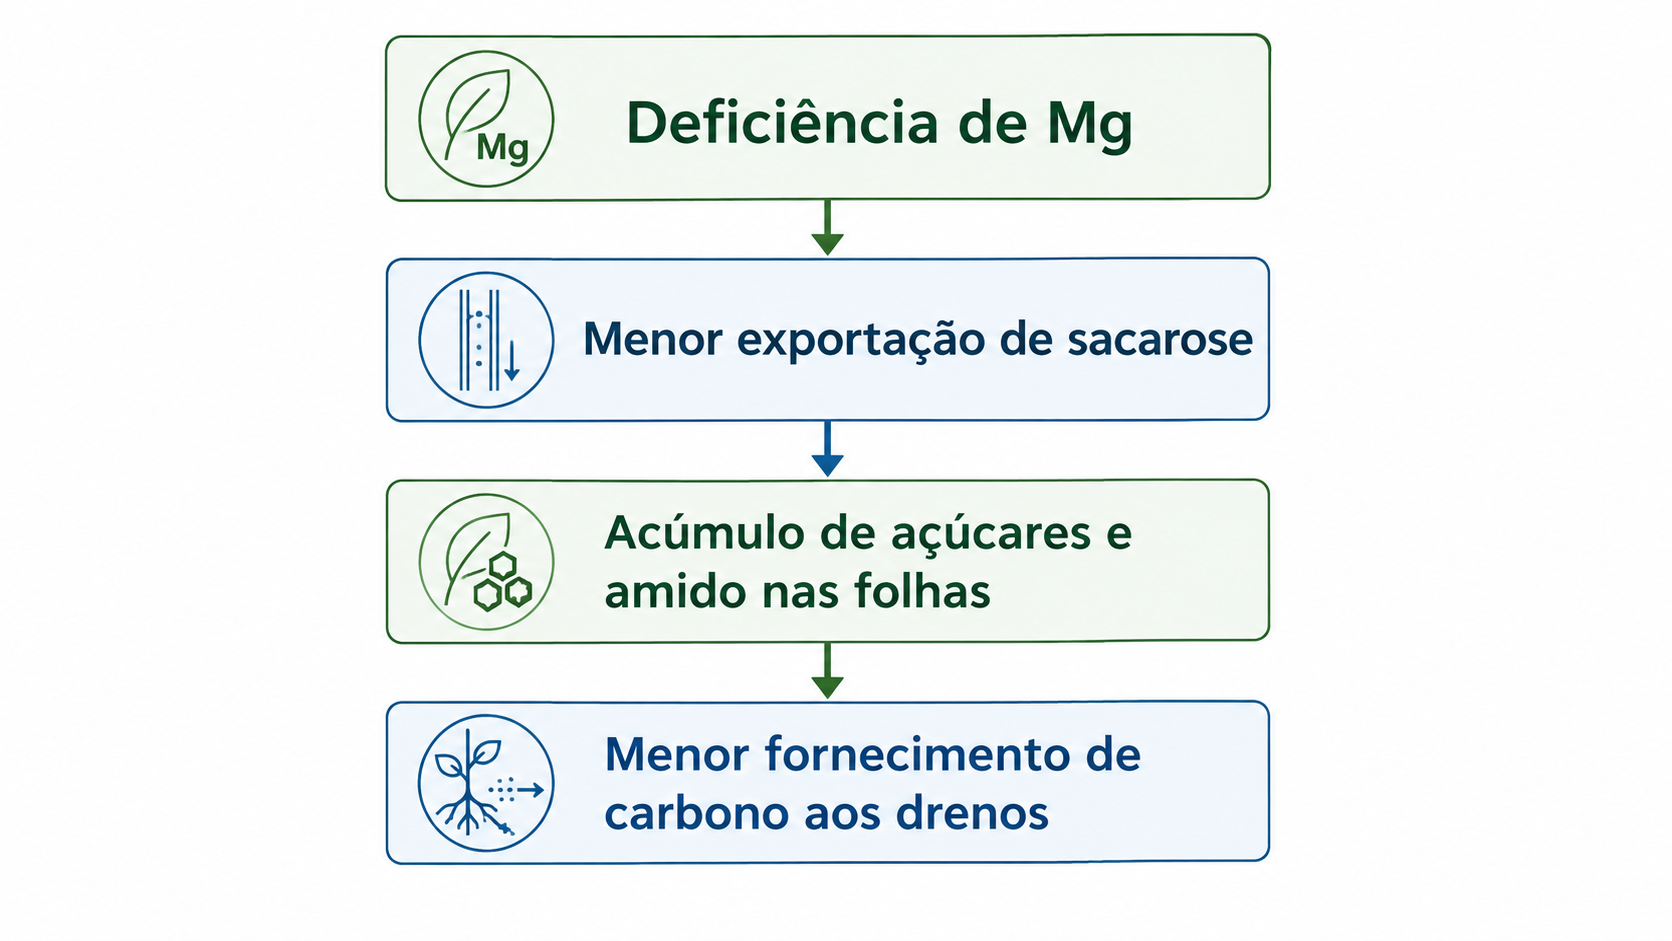
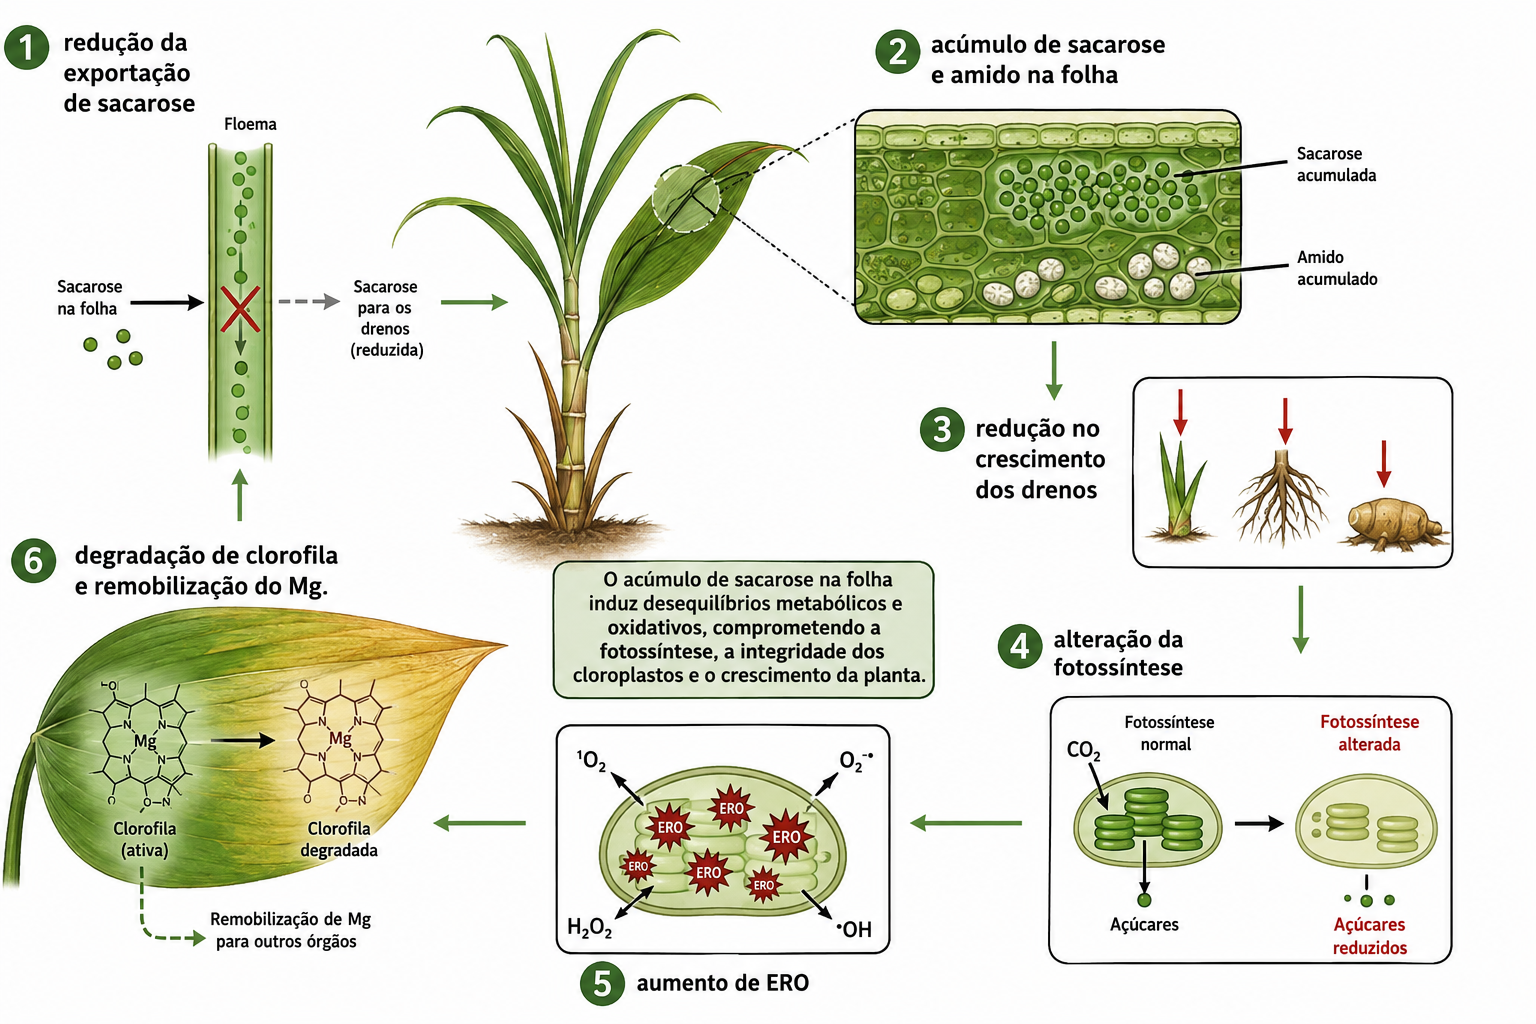
Em feijoeiro, a deficiência de Mg diminuiu drasticamente a exportação de sacarose pelo floema, enquanto a concentração de sacarose aumentou na folha fonte. Após o restabelecimento do Mg, a exportação se recuperou rapidamente.

O resultado pode ser resumido assim:

Em outro experimento com feijoeiro, a deficiência de Mg aumentou fortemente a relação entre biomassa da parte aérea e das raízes e provocou acúmulo de carboidratos nas folhas fonte, consistente com menor transporte de carbono para as raízes.

Ponto importante:

Uma folha pode acumular açúcar não porque esteja fotossintetizando melhor, mas porque perdeu capacidade de exportá-lo.

Essa distinção é importante na interpretação de análises metabolômicas e de experimentos nutricionais.

Por que depois a fotossíntese também cai?

Se os carboidratos permanecem acumulados na folha, a relação fonte-dreno começa a se desequilibrar.

A planta interpreta o excesso de açúcares como sinal de que a produção de carbono está superando sua capacidade de utilização e exportação.

A fotossíntese passa então a sofrer regulação negativa.

Ao mesmo tempo, a luz continua chegando aos fotossistemas.

Se a energia capturada exceder a capacidade do metabolismo de utilizar NADPH e ATP para assimilação de carbono, aumenta a pressão de redução sobre a cadeia de transporte de elétrons.

Parte dessa energia pode ser desviada para o oxigênio, aumentando a formação de espécies reativas.

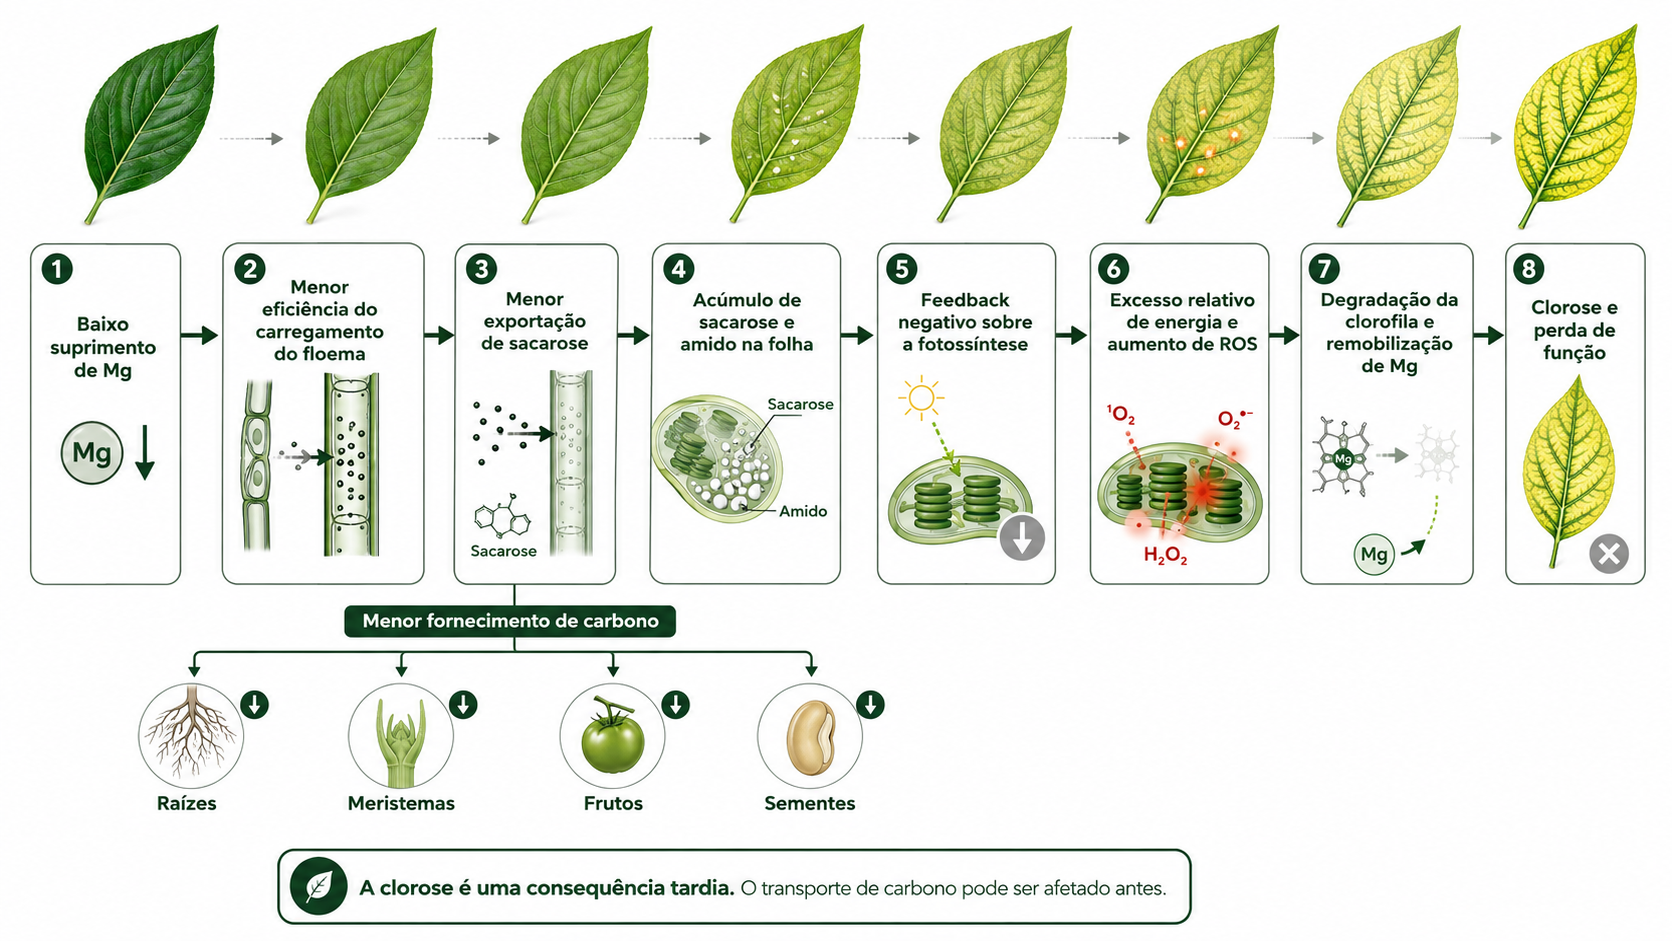
Experimentos em arroz mostraram que a deficiência de Mg aumentou ERO e ativou um processo de degradação de clorofila mediado por STAY-GREEN, ou SGR. O mecanismo libera Mg da clorofila de folhas já desenvolvidas e permite sua remobilização para tecidos jovens.

Isso muda a interpretação da clorose.

Ela não representa simplesmente:

“faltou Mg para fabricar clorofila”.

Em deficiência prolongada, também pode representar:

remobilização de Mg + estresse foto-oxidativo + degradação regulada do aparato fotossintético.

Figura 2. A deficiência de Mg pode inicialmente reduzir a exportação de sacarose. O acúmulo de carboidratos altera a regulação da fotossíntese, aumenta o desequilíbrio entre captura e utilização de energia e favorece ROS, remobilização de Mg e, posteriormente, clorose.

Do solo à folha: como a planta absorve e distribui magnésio

No solo, a planta encontra o magnésio principalmente como Mg²⁺ na solução e na fração trocável.

A disponibilidade depende da interação entre:

  • quantidade de Mg no solo;
  • textura;
  • capacidade de troca catiônica;
  • acidez;
  • água;
  • sistema radicular;
  • outros cátions presentes.

O raio hidratado relativamente grande do Mg²⁺ contribui para sua maior vulnerabilidade à lixiviação em solos arenosos, ácidos e de baixa CTC.

A água possui papel especialmente importante porque grande parte do Mg chega à superfície radicular pelo fluxo de massa. Portanto, baixa umidade do solo pode reduzir o suprimento mesmo quando o teor químico do nutriente não é extremamente baixo.

A entrada pela raiz é controlada

A absorção não ocorre como simples passagem livre do Mg²⁺.

Proteínas da família MGT/MRS2 participam do transporte através das membranas.

Em Arabidopsis, MGT6 é importante para a aquisição de Mg quando a disponibilidade externa é baixa. Plantas com deficiência funcional nesse transportador apresentaram menor concentração de Mg e crescimento comprometido sob baixo fornecimento.

O conhecimento molecular ainda vem sendo ampliado, e diferentes culturas possuem conjuntos próprios de transportadores e mecanismos regulatórios. O princípio geral, porém, é claro: a planta regula ativamente a entrada e a distribuição do magnésio.

Da raiz para a parte aérea

Depois de atravessar córtex e endoderme, Mg precisa ser liberado para o xilema.

Um avanço importante ocorreu com a identificação de quatro transportadores, MGR4, MGR5, MGR6 e MGR7, localizados predominantemente nas células da estela radicular.

Mutantes de MGR4 e MGR6 retiveram mais Mg nas raízes e apresentaram menor translocação para a parte aérea, demonstrando a participação dessas proteínas no carregamento do xilema.

A água transporta então Mg²⁺ pelo xilema em direção às folhas.

E depois ele pode voltar

Ao contrário do cálcio, o magnésio apresenta boa mobilidade floemática.

Experimentos com ^28Mg demonstraram a redistribuição do elemento entre órgãos, e essa mobilidade explica por que a planta consegue retirar Mg de tecidos mais velhos e direcioná-lo para regiões em crescimento quando o suprimento se torna insuficiente.

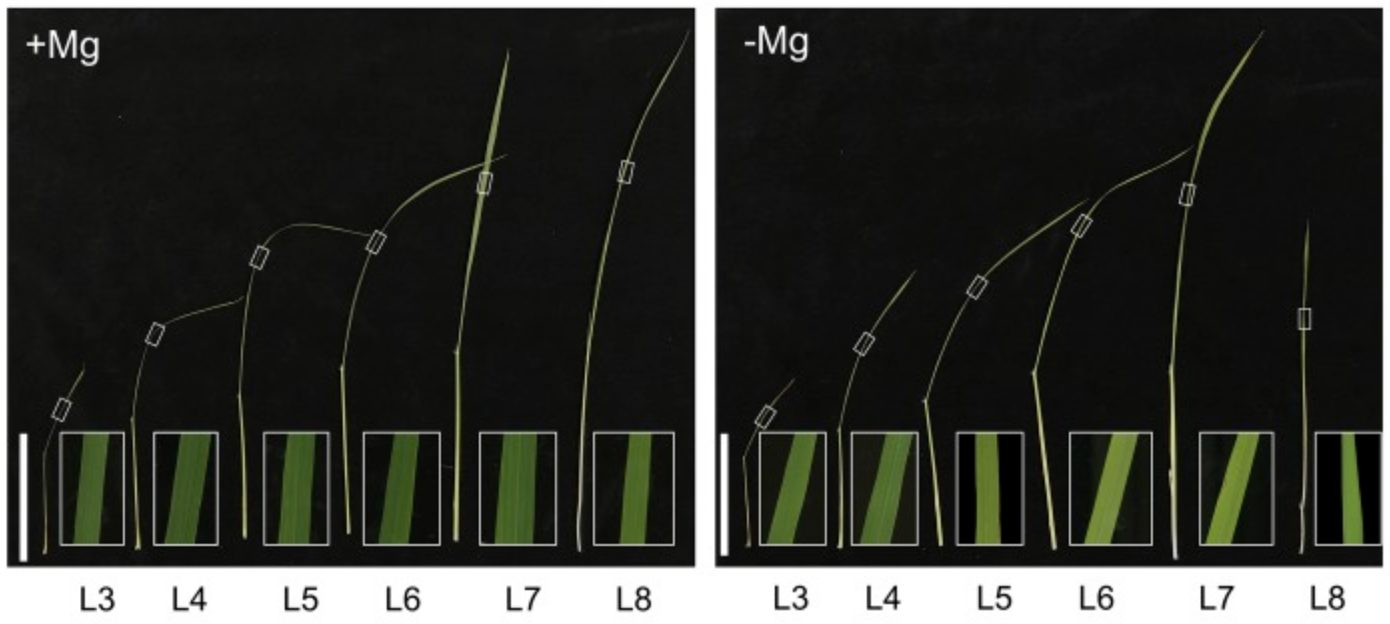
Por isso, a deficiência apresenta classicamente clorose internerval em folhas desenvolvidas ou mais velhas, embora a posição exata dos primeiros sintomas possa variar conforme espécie, estádio e intensidade da remobilização. Em arroz, folhas de idade intermediária mostraram forte sensibilidade ao déficit e funcionaram como importantes fontes de Mg para folhas jovens.

O vacúolo funciona como uma reserva de magnésio

Ter muito Mg total em uma folha não significa que todo esse Mg esteja metabolicamente disponível.

Uma parcela importante pode estar armazenada no vacúolo.

Esse compartimento funciona como um sistema de tamponamento:

Quando existe excesso: armazena Mg²⁺ e evita concentração excessiva no citosol.

Quando existe deficiência: parte dessa reserva pode ser recuperada.

Em Arabidopsis, os transportadores MGT1 e MGT2 localizados no tonoplasto participam da recuperação de Mg armazenado no vacúolo durante deficiência. Mutantes incapazes de realizar adequadamente essa mobilização apresentaram sintomas mais severos mesmo contendo mais Mg total, porque parte desse nutriente ficou metabolicamente indisponível dentro do vacúolo.

Esse resultado traz uma lição importante para a nutrição vegetal:

Teor total de um nutriente e disponibilidade metabólica dentro da célula não são necessariamente a mesma coisa.

No sentido contrário, uma rede formada pelos sensores CBL2/CBL3 e pelas quinases CIPK3/9/23/26 participa do controle da sequestração vacuolar sob excesso de Mg, protegendo a célula contra concentrações inadequadas no citosol.

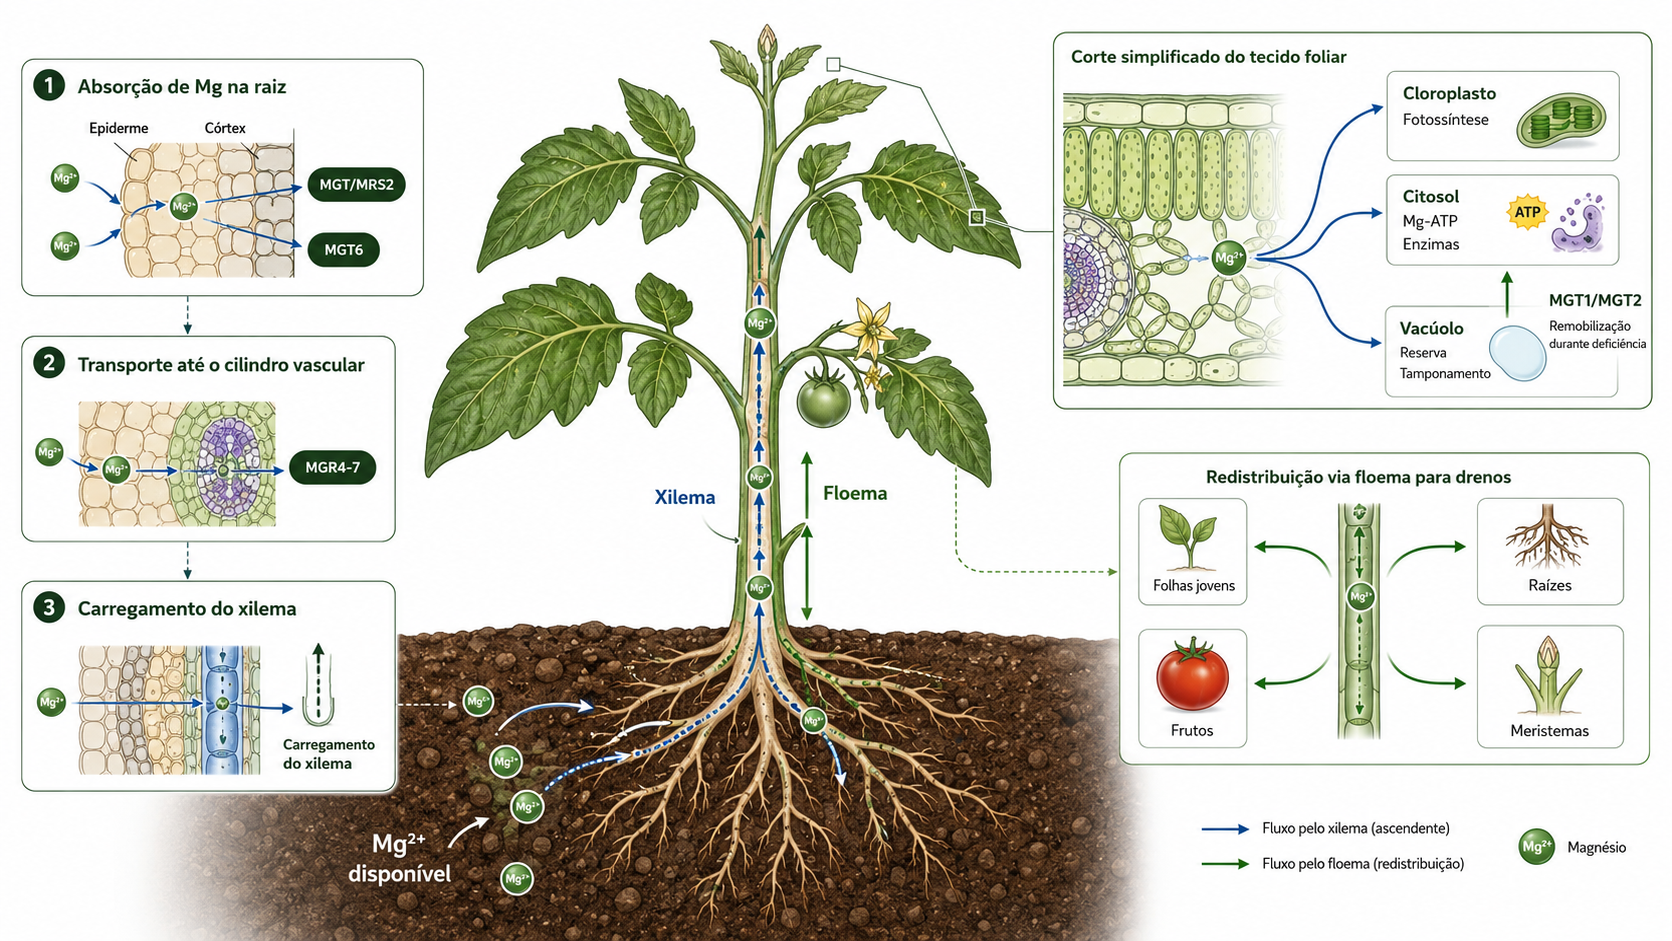
Figura 3. O Mg²⁺ é absorvido pelas raízes, carregado no xilema, distribuído à parte aérea, compartimentalizado entre citosol, vacúolos e cloroplastos e pode ser posteriormente remobilizado pelo floema.

Potássio, cálcio e magnésio: competição não significa uma relação fixa

Em sistemas agrícolas intensivos, uma das causas mais frequentes de problemas de Mg é a interação com outros cátions.

O exemplo mais conhecido é o potássio.

Elevadas concentrações de K⁺ na solução do solo podem reduzir a aquisição de Mg²⁺ pelas raízes, especialmente quando o Mg já se encontra em baixa disponibilidade.

Mas isso não deve ser traduzido na ideia de que existe uma relação K:Mg universal e obrigatória.

As plantas possuem mecanismos de compensação.

Um experimento de 2025 com milho mostrou que alta disponibilidade de K modificou a expressão dos transportadores ZmMGT10 e MGR6. O sistema aumentou componentes envolvidos na aquisição e na translocação de Mg, demonstrando que a interação K-Mg é fisiologicamente regulada, e não apenas uma competição química passiva.

O cálcio também interage com a homeostase de Mg.

Experimentos com Arabidopsis demonstraram que excesso de Mg altera a homeostase de Ca e que o aumento da disponibilidade externa de Ca pode amenizar determinados efeitos de excesso de Mg. O transportador MTP10 participa dessa coordenação nos tecidos vasculares.

Atenção técnica

Relações Ca:Mg ou K:Mg podem ajudar na interpretação, mas não devem substituir a avaliação das quantidades absolutas, da CTC, da disponibilidade de água e do estado nutricional da planta.

Uma relação aparentemente adequada pode coexistir com deficiência se ambos os elementos estiverem baixos.

Da mesma forma, uma relação considerada “desequilibrada” não comprova deficiência quando a disponibilidade absoluta e a absorção permanecem suficientes.

Magnésio também participa da eficiência do uso de nitrogênio

A relação com nitrogênio ocorre em vários níveis.

Assimilação de N exige:

  • ATP;
  • esqueletos de carbono;
  • atividade enzimática;
  • transporte de fotoassimilados.

Todos esses processos dependem direta ou indiretamente do estado de Mg.

Em leguminosas existe ainda uma conexão particularmente interessante.

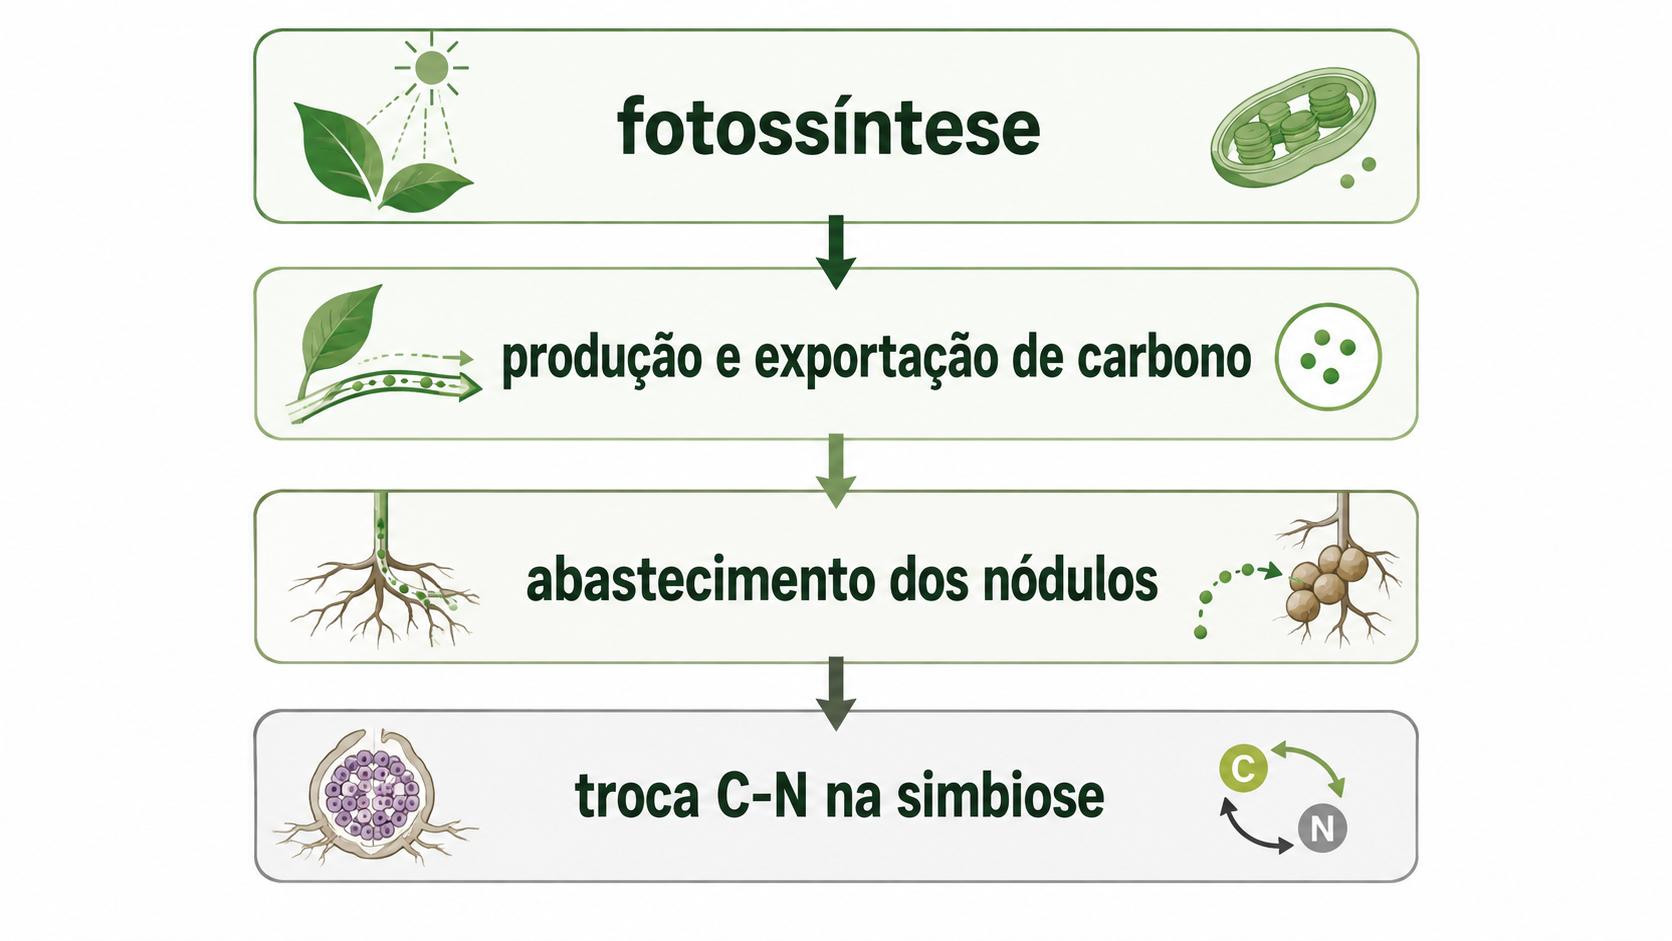
Em soja, um estudo identificou os transportadores GmMGT4 e GmMGT5 em nódulos. A importação de Mg para o córtex interno ajudou a manter a permeabilidade dos plasmodesmos e o intercâmbio de carbono e nitrogênio entre a planta e o sistema simbiótico. A redução dessa importação comprometeu a entrada de carbono e a exportação de N pelos nódulos.

Portanto, em soja, a importância do Mg ultrapassa a folha:

Esse mecanismo não significa que a aplicação de Mg aumentará automaticamente a fixação biológica de nitrogênio em qualquer lavoura.

Ele mostra algo mais importante: quando existe deficiência, o impacto fisiológico pode atingir sistemas que não seriam imediatamente associados ao magnésio.

Como a deficiência aparece na planta?

O sintoma clássico é a clorose internerval em folhas desenvolvidas, mantendo inicialmente as nervuras mais verdes.

Isso ocorre porque o Mg apresenta boa mobilidade interna e pode ser retirado de tecidos mais antigos para abastecer regiões de maior demanda.

Com o agravamento podem aparecer:

  • amarelecimento mais intenso;
  • pigmentação avermelhada ou arroxeada em algumas espécies;
  • manchas necróticas;
  • senescência;
  • redução de crescimento;
  • menor desenvolvimento radicular.

Entretanto, o sintoma visual é tardio.

Antes dele podem ocorrer:

Em arroz, a deficiência induziu especificamente a expressão de OsSGR, proteína associada à retirada do Mg da clorofila, permitindo remobilização para tecidos jovens.

Erro comum

Esperar a clorose para decidir se existe deficiência de Mg pode significar diagnosticar o problema depois que o transporte de carbono e outros processos já foram afetados.
Resposta de folhas de arroz à deficiência de magnésio. A intensidade da clorose variou com a idade foliar e esteve associada à remobilização de Mg para tecidos jovens. Adaptado de Peng et al. (2019), Plant Physiology, licença CC BY 4.0.

Implicações práticas: o que isso muda no manejo do magnésio?

A primeira mudança é abandonar a ideia de que o manejo de Mg começa quando a folha fica amarela.

O objetivo deveria ser preservar:

  • fotossíntese;
  • transporte de fotoassimilados;
  • atividade enzimática;
  • crescimento dos drenos;
  • equilíbrio com outros cátions.

Solo ácido e pobre em Mg

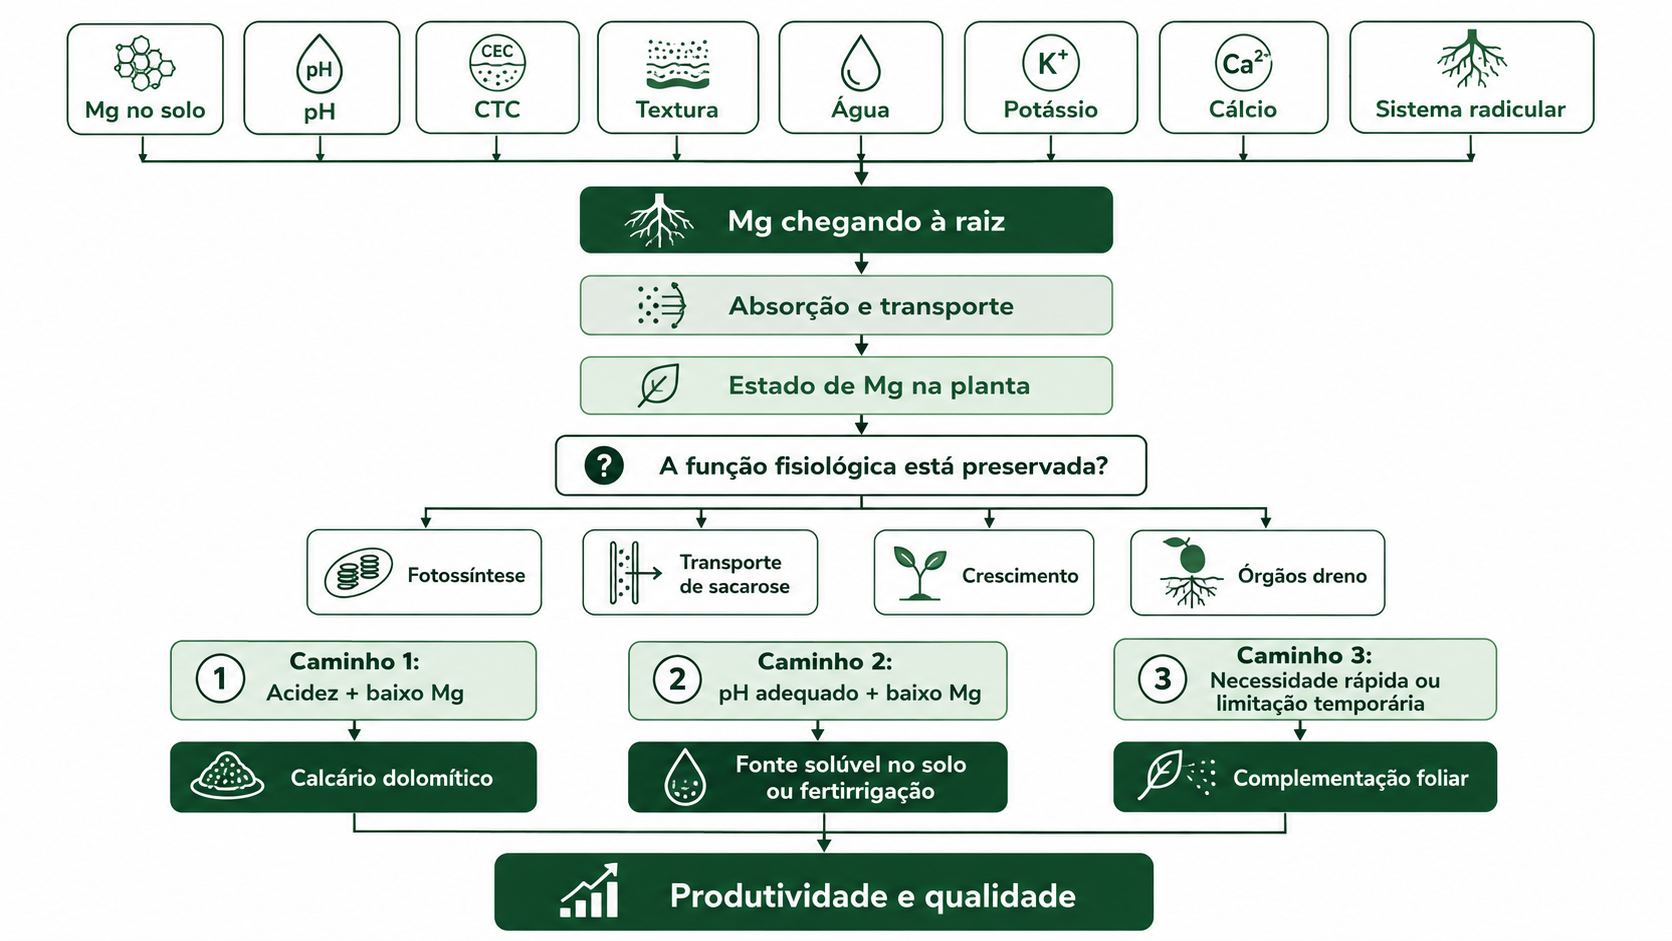
Quando existe acidez a corrigir e baixo teor de Mg, calcário dolomítico pode resolver dois problemas simultaneamente:

neutralizar acidez + fornecer Ca e Mg.


Entretanto, sua resposta não é imediata. Dissolução, granulometria, incorporação, umidade e poder de neutralização interferem na velocidade de disponibilização.

pH adequado, mas Mg insuficiente

Quando não há necessidade de elevar substancialmente o pH, fontes solúveis podem ser mais adequadas.

Entre as possibilidades estão:

  • sulfato de magnésio;
  • kieserita;
  • nitrato de magnésio em sistemas compatíveis;
  • outros fertilizantes contendo Mg.

A escolha depende também dos elementos acompanhantes. Sulfato fornece S, nitrato fornece N e fontes com K precisam ser avaliadas com cuidado quando o próprio potássio já está elevado.

Fertirrigação

Em cultivos irrigados, fontes solúveis permitem fracionar o suprimento e sincronizá-lo com demanda e volume radicular ativo.

Mas não basta verificar a quantidade anual aplicada.

É necessário considerar:

  • concentração na solução;
  • condutividade elétrica;
  • qualidade da água;
  • K;
  • Ca;
  • NH₄⁺;
  • distribuição do bulbo molhado.

Via foliar

Como o magnésio apresenta mobilidade no floema, a aplicação foliar pode ser utilizada como complementação ou ferramenta rápida de correção.

Isso não significa que deva substituir o manejo radicular.

Um estudo de campo de três safras em milho-doce cultivado em alta densidade encontrou aumento de SPAD, acúmulo de nutrientes, enchimento de grãos e produtividade com aplicações foliares de MgSO₄·7H₂O. O tratamento mais eficiente naquele experimento utilizou três aplicações de solução a 4%, mas esse resultado pertence àquelas condições experimentais e não constitui uma concentração universal para outras culturas ou ambientes.

A via foliar faz mais sentido quando existe:

  • necessidade de resposta relativamente rápida;
  • limitação temporária da absorção radicular;
  • deficiência identificada;
  • demanda elevada em período específico;
  • complementação de um programa radicular adequado.
Figura 4. O estado de Mg da planta resulta da interação entre disponibilidade no solo, água, competição catiônica, capacidade radicular, transporte interno e demanda fisiológica. A fonte de correção deve ser escolhida depois de identificar qual etapa está limitando o fornecimento.

Como diagnosticar corretamente?

O diagnóstico deve combinar solo e planta.

No solo

Avaliar:


  • Mg trocável;
  • CTC;
  • pH;
  • textura;
  • teor de K;
  • Ca;
  • histórico de calagem;
  • fertilização;
  • distribuição de água;
  • profundidade efetivamente explorada pelas raízes.

Em solos arenosos, a baixa capacidade de retenção aumenta a atenção necessária ao histórico de perdas.

Na planta

A análise foliar deve respeitar:


  • cultura;
  • folha diagnóstica;
  • estádio;
  • época;
  • metodologia laboratorial.

Não existe um teor crítico único de Mg que sirva para soja, milho, café, manga, videira ou citros.


Mesmo meta-análises que encontraram faixas críticas semelhantes entre algumas culturas mostram que a concentração necessária para manter fotossíntese pode ser diferente daquela suficiente apenas para manter biomassa. O princípio prático é importante: evitar sintoma visual não significa necessariamente otimizar função fisiológica.

No campo

Observar:


  • posição das folhas afetadas;
  • padrão internerval;
  • distribuição no talhão;
  • relação com textura;
  • irrigação;
  • histórico de potássio;
  • produtividade;
  • condição do sistema radicular.

Uma clorose internerval não deve ser diagnosticada como Mg apenas pela aparência, porque outros distúrbios nutricionais, doenças e estresses podem produzir padrões semelhantes.

Conclusão

O magnésio é frequentemente lembrado por estar no centro da clorofila.

Mas sua importância começa antes e termina muito depois dessa função.

Mg²⁺ ajuda a transformar ATP na forma reconhecida por numerosas enzimas, estabiliza ribossomos, participa da ativação da Rubisco, sustenta sistemas de transporte e contribui para o carregamento e a exportação de sacarose pelo floema.

Quando sua disponibilidade diminui, uma das primeiras respostas pode ser justamente o comprometimento do transporte de carbono.

Açúcares passam a se acumular nas folhas enquanto raízes e outros drenos recebem menos fotoassimilados. Com a continuidade da deficiência, a assimilação de CO₂ diminui, aumenta o desequilíbrio fotoquímico, formam-se ROS e a planta começa a desmontar parte do aparato fotossintético para remobilizar o próprio Mg.

Ao mesmo tempo, uma sofisticada rede de transportadores controla:

solo → raiz → xilema → folhas → organelas → vacúolo → floema.


MGT6 aumenta a capacidade de aquisição sob baixa disponibilidade. MGR4 a MGR7 participam do carregamento do xilema. MGT1 e MGT2 recuperam reservas vacuolares durante deficiência. Redes CBL-CIPK ajudam a evitar excesso no citosol.

Na agricultura, isso significa que manejar Mg exige mais do que observar uma análise de solo isolada.

É necessário compreender:

  • quanto Mg existe;
  • quanto está disponível;
  • quanto K e Ca estão presentes;
  • como está a água;
  • como estão as raízes;
  • qual é a demanda da cultura;
  • e se o carbono produzido pelas folhas está chegando aos órgãos que determinam produtividade.
O magnésio não serve apenas para manter a folha verde. Ele ajuda a transformar luz em carbono, carbono em energia utilizável e energia em crescimento nos órgãos que realmente importam para a produtividade.

Em cinco pontos

  1. O Mg vai muito além da clorofila, participando de ATP, ribossomos, enzimas e transporte de carboidratos.
  2. A deficiência pode reduzir a exportação de sacarose antes da clorose visível.
  3. Mg é móvel na planta, permitindo remobilização de tecidos desenvolvidos para novos drenos.
  4. K, Ca, água, pH e CTC modificam sua disponibilidade e absorção.
  5. O manejo deve buscar suficiência fisiológica e equilíbrio, não simplesmente aumentar Mg ou perseguir uma relação catiônica fixa.

Perguntas frequentes

Por que o magnésio é importante para as plantas?

Porque participa da clorofila, do Mg-ATP, da ativação enzimática, da estabilidade dos ribossomos, da fotossíntese e do transporte de fotoassimilados.

Qual é o principal sintoma da deficiência de Mg?

A clorose internerval em folhas desenvolvidas é o sintoma clássico, mas alterações metabólicas podem ocorrer antes do amarelecimento.

Potássio em excesso pode causar deficiência de magnésio?

Pode reduzir a absorção de Mg em determinadas condições, principalmente quando a disponibilidade de Mg já é limitada. A magnitude depende da concentração dos íons, da cultura e da capacidade da planta de regular seus transportadores.

Por que a deficiência aparece nas folhas mais velhas?

Porque o Mg possui mobilidade floemática e pode ser remobilizado para tecidos jovens. A distribuição exata varia entre espécies e idades foliares.

Calcário dolomítico é sempre a melhor fonte?

Não. É especialmente interessante quando também existe necessidade de corrigir acidez. Em solo com pH adequado, uma fonte solúvel de Mg pode ser agronomicamente mais apropriada.

Magnésio foliar funciona?

Pode funcionar como complemento ou correção rápida, mas sua eficiência depende do diagnóstico, fonte, concentração, tecnologia de aplicação e condição fisiológica da cultura. Não substitui automaticamente o fornecimento radicular.

Referências

Cakmak, I.; Hengeler, C.; Marschner, H. 1994. Changes in phloem export of sucrose in leaves in response to phosphorus, potassium and magnesium deficiency in bean plants. Journal of Experimental Botany, 45, 1251-1257. DOI: 10.1093/jxb/45.9.1251.

Cakmak, I.; Hengeler, C.; Marschner, H. 1994. Partitioning of shoot and root dry matter and carbohydrates in bean plants suffering from phosphorus, potassium and magnesium deficiency. Journal of Experimental Botany, 45, 1245-1250.

Mao, D. et al. 2014. Arabidopsis transporter MGT6 mediates magnesium uptake and is required for growth under magnesium limitation. The Plant Cell.

Tang, R. J. et al. 2015. Tonoplast CBL-CIPK calcium signaling network regulates magnesium homeostasis in Arabidopsis. Proceedings of the National Academy of Sciences, 112, 3134-3139. DOI: 10.1073/pnas.1420944112.

Peng, Y. Y. et al. 2019. Magnesium deficiency triggers SGR-mediated chlorophyll degradation for magnesium remobilization. Plant Physiology, 181, 262-275. DOI: 10.1104/pp.19.00610.

Meng, S. F. et al. 2022. Four plasma membrane-localized MGR transporters mediate xylem Mg²⁺ loading for root-to-shoot Mg²⁺ translocation in Arabidopsis. Molecular Plant, 15, 805-819. DOI: 10.1016/j.molp.2022.01.011.

Tang, R. J.; Yang, Y.; Luan, S. 2022. Two transporters mobilize magnesium from vacuolar stores to enable plant acclimation to magnesium deficiency. Plant Physiology, 190, 1307-1320. DOI: 10.1093/plphys/kiac330.

Ge, H. et al. 2022. A metal tolerance protein, MTP10, is required for the calcium and magnesium homeostasis in Arabidopsis. Plant Signaling & Behavior, 17, 2025322. DOI: 10.1080/15592324.2021.2025322.

Cao, H. R. et al. 2022. Carbon-nitrogen trading in symbiotic nodules depends on magnesium import. Current Biology, 32, 4337-4349.e5. DOI: 10.1016/j.cub.2022.08.019.

Dölger, J. L. et al. 2025. The magnesium-specific uptake and translocation transporters ZmMGT10 and MGR6 are upregulated not only by magnesium deficiency but also by high potassium concentrations in maize. Plant Physiology and Biochemistry, 224, 109977. DOI: 10.1016/j.plaphy.2025.109977.
AF
Sobre o autor
André Ferraz

Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.