Neste artigo48 tópicos

Como a demanda evaporativa altera estômatos, fotossíntese, açúcares, crescimento e relações fonte-dreno, mesmo quando ainda existe água no solo

Durante uma tarde quente e seca, uma lavoura pode estar com o solo ainda úmido e, mesmo assim, reduzir fortemente a fotossíntese.


O problema, nesse caso, pode não estar no solo. Pode estar no ar.


Quando a temperatura aumenta e a umidade relativa diminui, cresce o déficit de pressão de vapor, ou DPV. Em termos simples, o ar passa a exercer uma demanda maior por água. Para a planta, isso aumenta o gradiente que favorece a saída de vapor das folhas.

A primeira reação parece pertencer apenas à fisiologia da água: transpiração aumenta, o potencial hídrico tende a cair e os estômatos começam a restringir sua abertura.

Mas o DPV também é um problema de carbono.

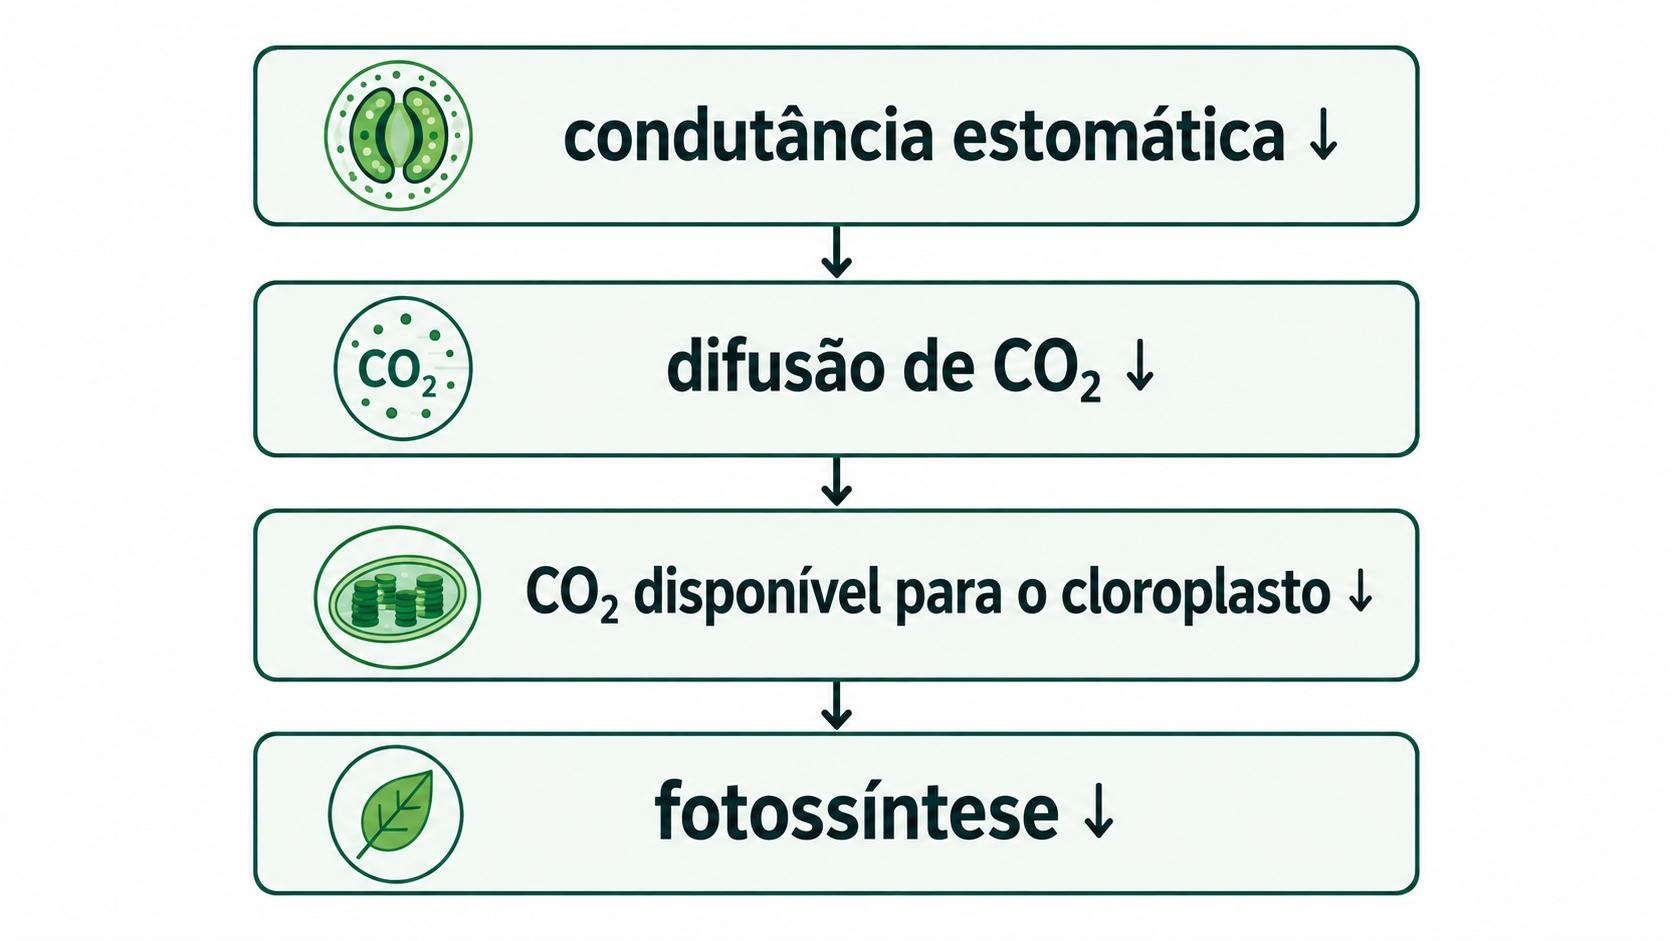
Fechar os estômatos economiza água, mas dificulta a entrada de CO₂. Menos CO₂ chegando ao cloroplasto significa menor assimilação de carbono e, portanto, menos carboidratos novos sendo produzidos.

Essa é apenas a primeira parte da história.

Os açúcares que a planta já produziu continuam circulando, sendo armazenados e consumidos. Alguns ajudam a sustentar o potencial osmótico das células. Outros alimentam raízes, meristemas, flores, frutos e grãos. Parte pode permanecer na folha quando o crescimento dos drenos diminui. Em determinadas situações, a planta consegue inclusive deslocar parte do crescimento para horários em que a demanda atmosférica é menor.

Por isso, alto DPV não significa simplesmente:

menos fotossíntese → menos açúcar.

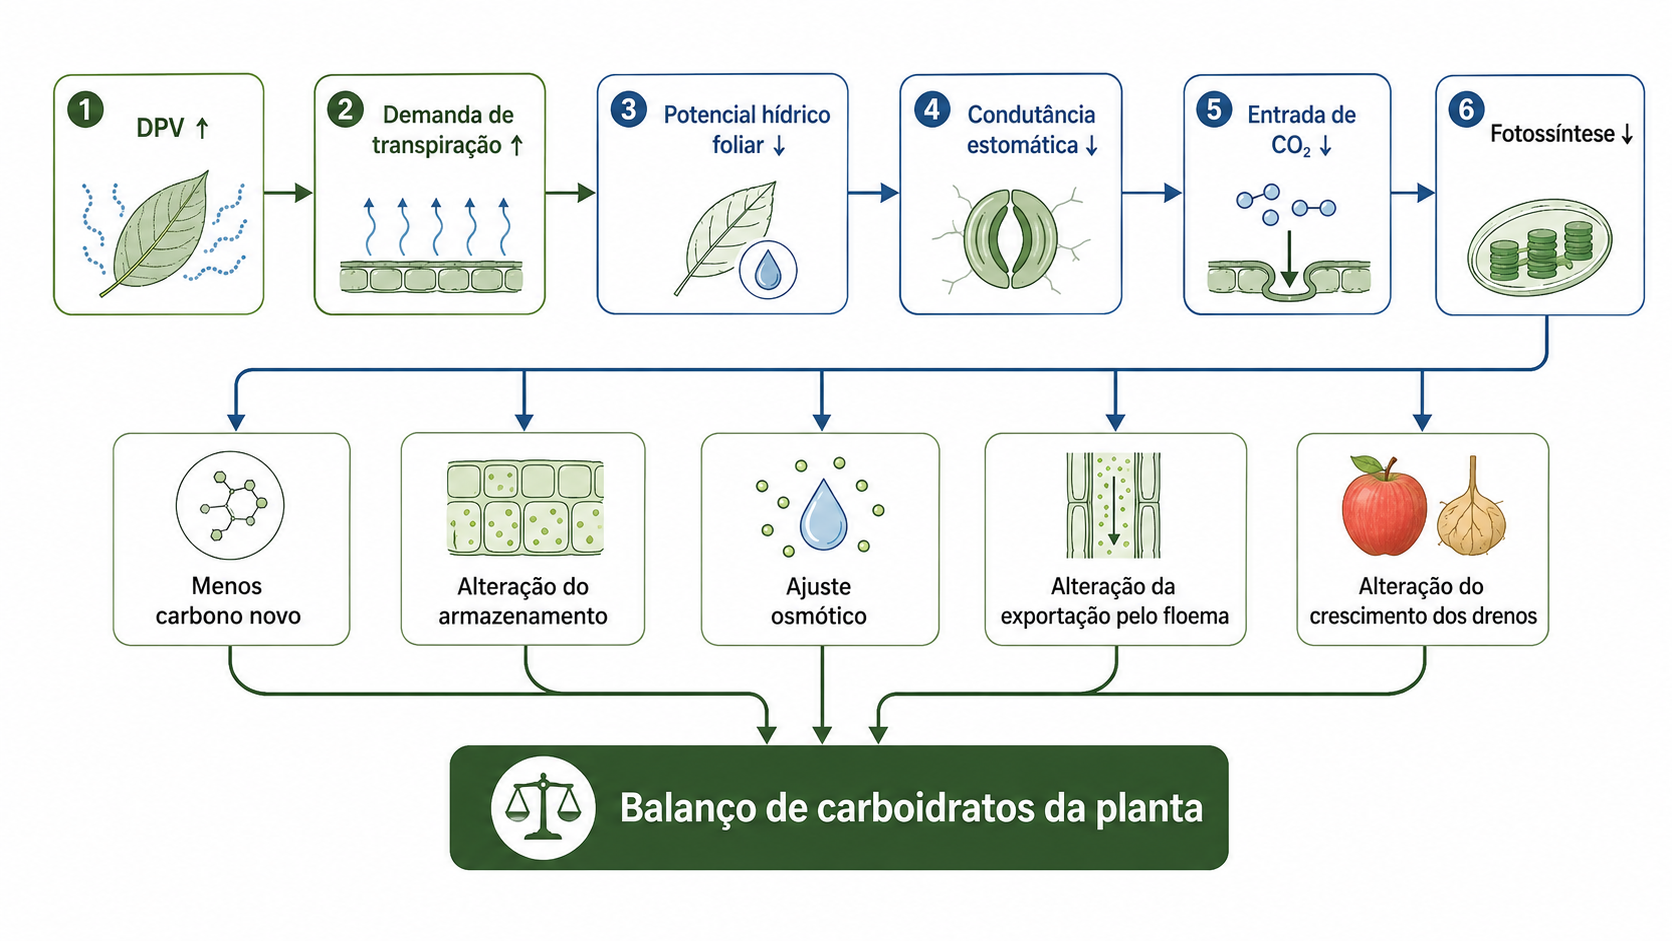
A resposta real pode envolver simultaneamente:

menor produção de carbono + mudança no uso dos carboidratos + alteração do transporte + mudança na força dos drenos + ajuste osmótico.

Esse raciocínio ajuda a explicar fenômenos frequentes na agricultura: a queda da fotossíntese no meio da tarde em plantas irrigadas, diferenças de comportamento entre cultivares, redução do enchimento de frutos ou grãos em períodos quentes e secos e até situações em que açúcares se acumulam em determinados tecidos enquanto o crescimento desacelera.

O DPV não controla apenas quanto a planta transpira. Ele modifica a economia de carbono da planta inteira.

Neste artigo, você vai entender

  • o que realmente é DPV e por que ele é diferente de temperatura ou umidade isoladamente;
  • por que o DPV que a folha sente pode ser diferente daquele medido pela estação meteorológica;
  • como a resposta estomática conecta água e assimilação de carbono;
  • por que alto DPV pode limitar fotossíntese mesmo com solo irrigado;
  • por que concentração de açúcares na folha pode aumentar mesmo quando a fotossíntese diminui;
  • como sacarose, glicose, frutose e frutanos participam do balanço osmótico e metabólico;
  • o que pode acontecer com o transporte pelo floema;
  • como DPV modifica relações fonte-dreno e crescimento;
  • o que estudos em trigo, soja, milho, algodão, café e tomate mostram;
  • como transformar essas informações em indicadores mais úteis para a lavoura.

O que é, afinal, o DPV?

O ar possui uma capacidade máxima de conter vapor d’água que depende fortemente da temperatura.


Quanto mais quente o ar, maior essa capacidade.


O DPV representa a diferença entre a pressão de vapor que existiria se o ar estivesse saturado e a pressão de vapor realmente presente.

Uma forma simplificada de expressá-lo é:

\[ DPV = e_s - e_a \]

em que:

  • \(e_s\) = pressão de vapor de saturação;
  • \(e_a\) = pressão de vapor real do ar.

A pressão de saturação pode ser estimada por:

\[ e_s(T) = 0{,}6108 \times \exp\left( \frac{17{,}27T}{T + 237{,}3} \right) \]

com \(T\) em °C e resultado em kPa.

Quando utilizamos temperatura do ar e umidade relativa:

\[ DPV_{\mathrm{ar}} = e_s(T_{\mathrm{ar}}) \times \left( 1 - \frac{UR}{100} \right) \]

O ponto importante está na dependência exponencial da temperatura.

Uma mudança aparentemente pequena de temperatura pode aumentar bastante a demanda evaporativa, principalmente quando a umidade do ar também cai.

É por isso que dizer apenas que uma tarde chegou a 34 °C não descreve adequadamente o ambiente fisiológico experimentado pela planta.


A mesma temperatura pode representar condições muito diferentes com 80% ou 35% de umidade relativa.

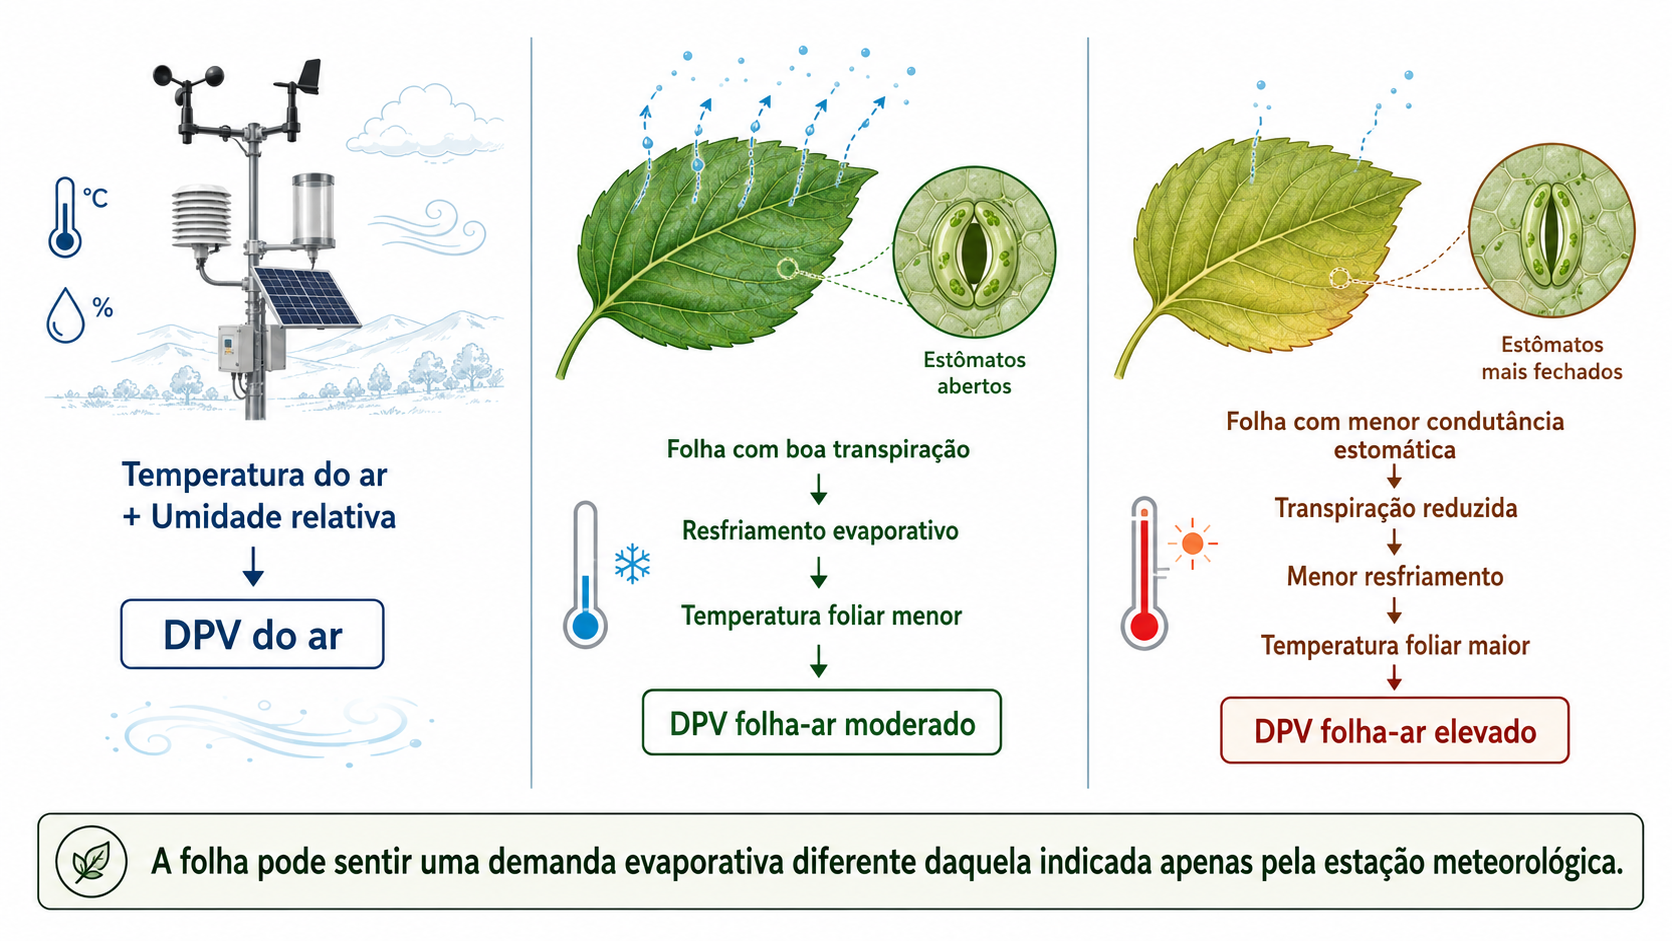
DPV do ar e DPV folha-ar não são exatamente a mesma coisa

Existe uma segunda distinção particularmente importante para a fisiologia.

A estação meteorológica calcula o DPV a partir da temperatura e da umidade do ar.

A folha, porém, pode estar mais quente ou mais fria que o ambiente.

Quando a transpiração está elevada, o resfriamento evaporativo pode manter a folha abaixo da temperatura do ar. Se os estômatos fecham e o resfriamento diminui, a folha pode aquecer.

Por isso, do ponto de vista da perda de água, interessa especialmente o gradiente folha-ar:

DPVfolha-ar = es (Tfolha) − ea

Na forma convencional desse cálculo, considera-se que o ar nos espaços internos da folha está próximo da saturação.

Grossiord et al. (2020) destacam que o DPV folha-ar é mais apropriado para representar o ambiente efetivamente percebido pela folha porque temperatura foliar, radiação e camada-limite podem desacoplar a folha do ar medido alguns metros ao lado.

Essa distinção é particularmente importante em culturas com dossel exposto à radiação intensa.

Uma estação pode indicar determinado DPV enquanto folhas diretamente expostas ao sol estão enfrentando um gradiente evaporativo consideravelmente maior.

A base conceitual que conecta DPV atmosférico, temperatura foliar, demanda evaporativa e metabolismo de carboidratos também aparece no levantamento utilizado para estruturar esta análise.

Figura 1. O DPV do ar depende da temperatura e da umidade relativa, mas o gradiente efetivamente experimentado pela folha também depende de sua temperatura. Radiação, transpiração e resfriamento evaporativo podem fazer o DPV folha-ar diferir do valor atmosférico.

O primeiro elo com os carboidratos está nos estômatos

Quando o DPV aumenta, o gradiente que favorece a perda de água também aumenta.


Em uma faixa inicial, isso pode elevar a transpiração.


Mas a planta não permite que essa resposta continue indefinidamente.


O aumento do fluxo de água reduz o potencial hídrico das folhas e modifica o balanço hidráulico entre solo, raiz, xilema e atmosfera. Dependendo da espécie e do genótipo, os estômatos começam então a restringir sua abertura.


A resposta pode ocorrer em minutos.


O fechamento protege a planta contra perda excessiva de água, mas cria um custo inevitável:

O DPV passa, assim, a conectar diretamente duas economias que a planta precisa equilibrar:

água e carbono.

E isso pode ocorrer antes mesmo de o solo atingir uma condição que seria classificada agronomicamente como seca.

A planta pode ter água no solo e ainda assim perder fotossíntese

Esse talvez seja um dos aspectos mais úteis do DPV para interpretação de campo.

Fakhet et al. (2021) trabalharam com trigo duro, Triticum durum cv. Sula, e separaram o efeito da disponibilidade de água no substrato do efeito da demanda atmosférica.

As plantas foram expostas durante cinco dias a DPV diurno de aproximadamente 1,01 kPa ou 2,27 kPa.

Mesmo quando havia disponibilidade adequada de água no substrato, o DPV mais elevado afetou a troca gasosa e o metabolismo de carbono.

Quando alto DPV e restrição hídrica no substrato ocorreram juntos, o efeito se aprofundou e passou a envolver não apenas fechamento estomático, mas menor transporte eletrônico e alterações na expressão da subunidade grande da Rubisco e da Rubisco ativase.

Esse estudo ajuda a desfazer uma associação comum:

água no solo suficiente não garante que a folha consiga manter a aquisição de carbono em uma atmosfera muito seca.

A raiz pode estar em solo úmido enquanto a folha enfrenta, algumas horas por dia, uma demanda que ultrapassa a capacidade hidráulica de manter estômatos amplamente abertos.

Então alto DPV sempre reduz os açúcares da folha?

Não.

Essa é justamente a parte mais interessante.

A fotossíntese determina a entrada de carbono no sistema.

Mas a concentração de açúcar de uma folha depende também de quanto carbono:

  • é exportado;
  • é consumido pelo crescimento;
  • é convertido em amido;
  • é utilizado na respiração;
  • permanece como soluto;
  • chega aos órgãos dreno.

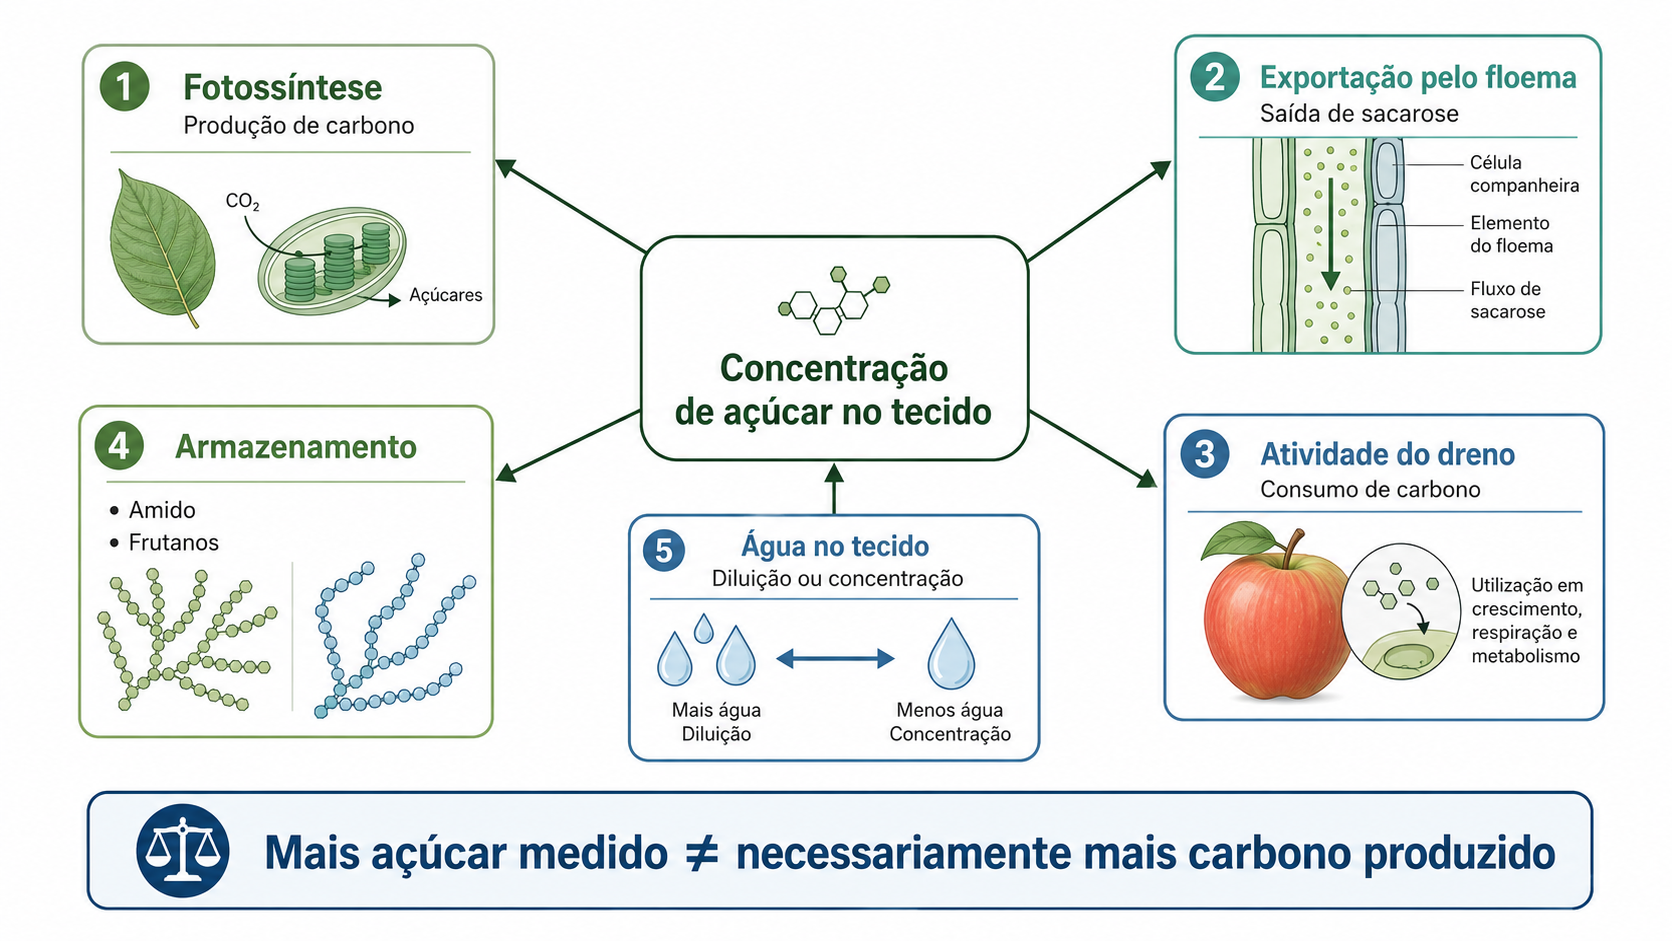
Uma folha pode, portanto, produzir menos carbono e ainda acumular determinados carboidratos se o consumo ou a exportação caírem ainda mais.

É aqui que precisamos separar:

produção de carboidratos

de

estoque de carboidratos.

Açúcar acumulado não significa fotossíntese elevada

Baca Cabrera et al. (2020) oferecem um exemplo particularmente didático.

Os pesquisadores cultivaram Lolium perenne sob duas condições de DPV diurno, aproximadamente 0,59 e 1,17 kPa, mantendo as plantas bem irrigadas.

Eles avaliaram frutose, glicose, sacarose e frutanos na região de crescimento das folhas.

O DPV mais elevado aumentou, em média, a concentração de frutanos em 43% e os carboidratos solúveis totais em aproximadamente 16%. Ao mesmo tempo, os tecidos apresentaram diferenças importantes entre dia e noite. A sacarose, por exemplo, diminuiu cerca de 25% do fim do dia para o fim da noite.

Esse resultado poderia ser interpretado rapidamente como:

“alto DPV aumenta açúcares para ajuste osmótico”.

Mas os próprios dados pedem mais cuidado.

Os carboidratos solúveis contribuíram com aproximadamente 26% a 34% do potencial osmótico total da região de crescimento, mas essa contribuição não diferiu sistematicamente entre os tratamentos de DPV.

Portanto, o estudo mostra algo mais interessante que uma regra simples.

Houve modificação da composição dos carboidratos e de sua dinâmica diária, mas não uma evidência de que todo aumento de açúcares representasse diretamente maior ajuste osmótico.

O que esse resultado realmente mostra

A concentração de um açúcar não deve ser interpretada isoladamente.

Sacarose, glicose, frutose e polímeros de reserva podem cumprir papéis diferentes como:

  • substratos metabólicos;
  • osmólitos;
  • reservas;
  • sinais;
  • moléculas destinadas ao transporte.

O que importa é qual pool mudou e para onde o carbono estava indo.

A planta também pode deslocar crescimento para outro horário

O mesmo trabalho com Lolium perenne mostrou um fenômeno muito interessante.

Sob maior demanda evaporativa, o crescimento foliar durante o dia ficou mais limitado.

Mas o crescimento durante a noite aumentou e compensou grande parte da restrição diurna.

A taxa de alongamento noturno chegou a ser muito maior que a diurna em determinadas combinações experimentais, enquanto o crescimento total em 24 horas permaneceu relativamente estável. Baca Cabrera et al. (2020) interpretaram esse comportamento dentro do conceito de stored growth, ou crescimento armazenado: parte do potencial de expansão que não consegue se expressar durante a fase de baixo turgor pode aparecer quando o turgor é recuperado.

Isso muda novamente a leitura do DPV.

A atmosfera pode alterar não apenas:

quanto a planta cresce


mas também:

em que horário ela consegue crescer.


Os carboidratos disponíveis durante a noite passam então a sustentar crescimento que havia sido hidraulicamente limitado durante o dia.

Figura 2. O aumento do DPV pode reduzir condutância estomática e assimilação de CO₂, mas a concentração de açúcares dependerá também de exportação, armazenamento, ajuste osmótico e atividade dos drenos. Menor fotossíntese não significa obrigatoriamente menor açúcar foliar em todos os momentos.

Os carboidratos têm quatro destinos importantes sob DPV elevado

Quando a demanda atmosférica cresce, quatro funções dos carboidratos passam a ser particularmente relevantes.

1. Sustentar metabolismo e crescimento

Sacarose produzida nas folhas alimenta tecidos que não conseguem sustentar sozinhos sua demanda energética.

Raízes, flores, frutos e grãos dependem fortemente desse fluxo.

Se a fotossíntese cai por várias horas todos os dias, a quantidade diária de carbono novo disponível para esses drenos também pode diminuir.

2. Servir de reserva

Parte dos fotoassimilados pode ser armazenada temporariamente.

Essas reservas funcionam como um amortecedor.

Novick et al. (2024) ressaltam que plantas com reservas suficientes podem manter crescimento por algum tempo mesmo quando alto DPV reduz a fotossíntese, principalmente se existirem períodos, como a noite, em que turgor e crescimento se recuperam.

Quando a redução da assimilação se prolonga, porém, esse amortecimento começa a se esgotar.

3. Participar do ajuste osmótico

Açúcares solúveis contribuem para diminuir o potencial osmótico celular.

Isso ajuda as células a manter água e turgor em ambientes em que o potencial hídrico se torna mais negativo.

Mas seu papel precisa ser avaliado junto de outros osmólitos e íons.

Encontrar mais sacarose ou glicose em uma folha não permite concluir automaticamente que a planta possui maior tolerância ao DPV.

4. Alimentar os drenos pelo floema

O carbono precisa sair da fonte.

Sacarose é carregada no floema, aumenta a concentração osmótica e favorece entrada de água. A diferença de pressão entre regiões fonte e dreno sustenta o fluxo de massa.

Isso significa que transporte de açúcar também depende de água.

Aqui, carbono e hidráulica voltam a se encontrar.

O DPV pode interferir no transporte pelo floema?

Provavelmente sim, mas essa parte da história exige uma distinção importante entre evidência direta e modelo fisiológico.


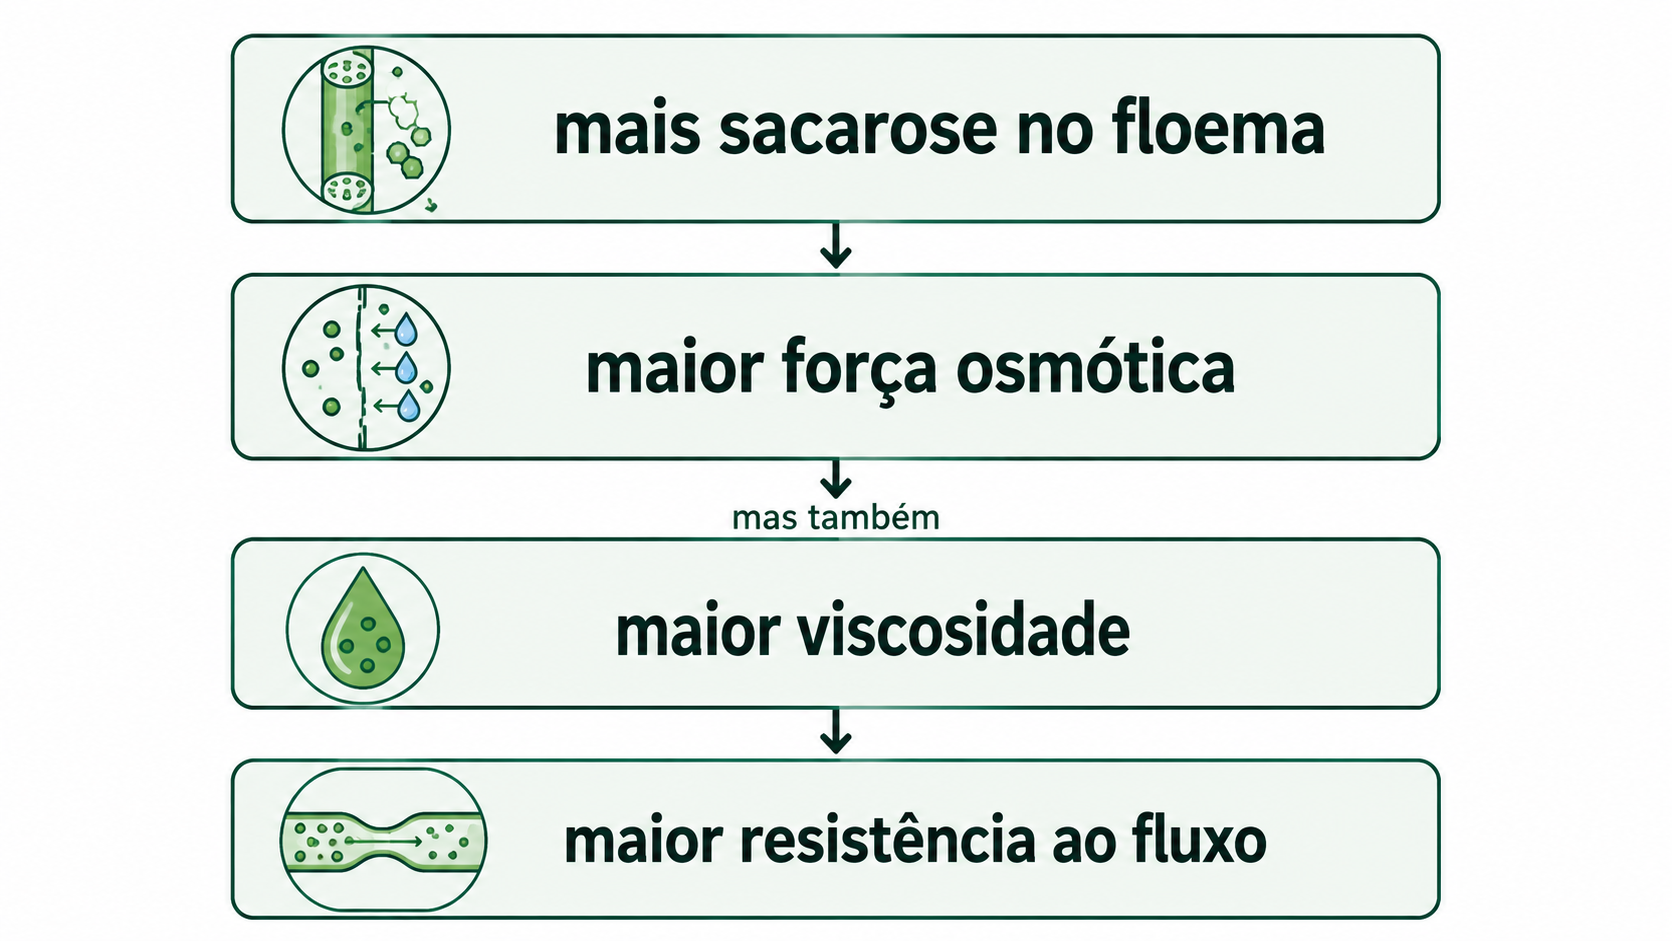
Sob redução do potencial hídrico, a entrada de água no floema pode diminuir. A planta pode compensar aumentando a concentração de sacarose na região de carregamento, tornando o potencial osmótico mais negativo e recuperando parte do turgor necessário ao transporte.


Mas aumentar demais a concentração de sacarose também aumenta a viscosidade da seiva.


Em modelos de transporte fonte-dreno, isso cria um possível limite:

Stanfield e Bartlett (2022) mostraram, em uma análise mecanística, que estrutura do floema e capacidade de carregamento podem ser decisivas para manter transporte de carbono quando o estado hídrico se deteriora.


Nikinmaa et al. (2013), utilizando um modelo integrado de xilema, floema e trocas gasosas, também mostraram como DPV pode alterar simultaneamente transpiração, fotossíntese, concentração de açúcares e transporte floemático.

A cautela é necessária porque grande parte dessas relações foi demonstrada por modelagem ou em estudos de déficit hídrico, e não isolando DPV atmosférico em todas as culturas.

Portanto, é mais correto afirmar:

Existe forte base fisiológica para esperar que o aumento persistente do DPV interfira na exportação e partição do carbono, mas a intensidade desse efeito varia entre espécies e ainda precisa ser melhor quantificada diretamente em culturas agrícolas.

Fonte e dreno também respondem ao DPV

Uma folha é fonte quando exporta mais carbono do que consome.

Frutos, raízes em crescimento, meristemas e grãos são drenos.

Mas a força de um dreno depende de sua capacidade de utilizar carbono.

Isso cria uma situação interessante sob alto DPV.

A fotossíntese pode diminuir.

Ao mesmo tempo, expansão celular e crescimento dos drenos também podem ser reduzidos pela queda do turgor.

Se o dreno desacelera mais rapidamente que a fonte, açúcar pode acumular na folha.

Se a fonte permanece limitada por muitos dias e os drenos continuam ativos, as reservas podem começar a cair.

Não existe, portanto, uma única assinatura de carboidratos para “alto DPV”.

O resultado depende de:

intensidade + duração + horário + estado hídrico do solo + fenologia + genética + força dos drenos.

Frutos mostram por que concentração e quantidade de açúcar são coisas diferentes

Esse cuidado é especialmente importante em frutíferas.

A concentração de açúcar de um fruto depende tanto da entrada de carbono quanto da quantidade de água presente naquele fruto.

Rebucci et al. (1997), trabalhando com uvas Pinot Noir e Sangiovese, manipularam a demanda evaporativa ao redor dos cachos e observaram mudanças no acúmulo de açúcar durante a maturação. A transpiração dos frutos esteve relacionada à entrada líquida de açúcares em determinados tratamentos. Ao mesmo tempo, condições de menor DPV reduziram a concentração de açúcar sem necessariamente reduzir o conteúdo total de açúcar por fruto.

A diferença é fundamental.

Um fruto pode apresentar °Brix maior simplesmente por conter menos água.

Isso não prova que mais carbono chegou até ele.

Concentração de açúcar e fluxo de carbono para o fruto não são a mesma variável.
Figura 3. A concentração de carboidratos resulta do balanço entre fotossíntese, consumo, armazenamento, exportação e água do tecido. Por isso, aumento de açúcares sob alto DPV pode representar ajuste osmótico, menor crescimento do dreno, menor diluição ou mudança de armazenamento, e não necessariamente maior produção de carbono.

O que estudos com culturas agrícolas mostram?

A fisiologia geral é importante, mas os dados de culturas agrícolas deixam a discussão mais concreta.

Trigo: a atmosfera pode limitar carbono sem seca do solo

Fakhet et al. (2021) mostraram que elevar o DPV diurno de aproximadamente 1,01 para 2,27 kPa já alterava fotossíntese e metabolismo de C e N em trigo duro.


Quando a menor disponibilidade de água no substrato foi adicionada ao alto DPV, o impacto atingiu também Rubisco, Rubisco ativase e transporte eletrônico.


No campo, isso significa: uma análise de umidade do solo isolada pode não explicar uma depressão de fotossíntese nas horas mais secas do dia.

Algodão: existe grande diferença entre genótipos

Devi e Reddy (2018) avaliaram 17 genótipos de algodoeiro entre aproximadamente 0,74 e 3,02 kPa.

Oito deles passaram a limitar a transpiração a partir de aproximadamente 2 kPa, enquanto os demais continuaram aumentando o uso de água.

Quando o DPV chegou a aproximadamente 3,3 kPa, todos os genótipos avaliados em detalhe reduziram condutância estomática, fotossíntese e potencial hídrico, embora os materiais com limitação de transpiração respondessem mais cedo.

Esse é um exemplo claro de como o mesmo ambiente pode produzir estratégias diferentes de economia de carbono e água.

Soja: economizar água tem custo de carbono

Estudos com genótipos de soja de murcha lenta encontraram estabilização da transpiração a partir de aproximadamente 2 kPa em alguns materiais, enquanto cultivares convencionais continuavam aumentando a transpiração com DPV crescente.

Gilbert et al. confirmaram esse comportamento no campo: havia genótipos praticamente sem resposta estomática ao DPV e outros com forte fechamento conforme a demanda atmosférica aumentava, chegando perto do fechamento completo próximo de 4 kPa. Essa estratégia conservava água, mas reduzia também a fotossíntese.

Portanto, selecionar uma planta que fecha cedo não é automaticamente vantajoso.

Em ambiente de sequeiro, conservar água ao meio-dia pode deixar água disponível para fases posteriores.

Em ambiente irrigado e com água abundante, fechar excessivamente cedo pode significar abrir mão de assimilação de carbono sem necessidade.

Milho: DPV aparece diretamente associado à produtividade

Um estudo publicado em 2025 analisou 92.096 observações de ensaios de híbridos no Corn Belt dos Estados Unidos.

Os autores identificaram uma relação não linear entre DPV e produtividade.

Durante o período vegetativo, o ponto de mudança estatístico ficou próximo de 1,4 kPa.

Durante enchimento de grãos, próximo de 1,3 kPa.

Acima de 1,3 kPa durante o enchimento, um aumento de 1 kPa no DPV esteve associado a redução média de 1,55 t ha⁻¹, equivalente a 12,4% da produtividade histórica do conjunto analisado.

Esses valores não devem virar “DPV crítico universal do milho”.

São limiares estatísticos de um grande conjunto de dados do Corn Belt.

Mas mostram algo agronomicamente importante: o período de enchimento parece particularmente sensível à atmosfera seca, justamente quando a planta precisa manter produção e transporte de carbono para o grão.

O mesmo estudo encontrou avanço com melhoramento. A perda estimada relacionada ao aumento de DPV caiu de cerca de 25% nos híbridos mais antigos para 16% nos materiais mais novos nas condições analisadas.

Café: temperatura e DPV não devem ser confundidos

Esse é um exemplo particularmente relevante para a agricultura brasileira.

DaMatta (2025) chama atenção para um ponto recorrente na interpretação do cafeeiro: quedas de fotossíntese em tardes quentes são frequentemente atribuídas diretamente à temperatura.

Entretanto, Coffea arabica e C. canephora podem manter aparato fotossintético funcional em temperaturas relativamente altas quando outros fatores são controlados.

No campo, o aumento da temperatura costuma elevar simultaneamente o DPV. O fechamento estomático decorrente dessa demanda evaporativa pode limitar a entrada de CO₂ antes que a temperatura produza uma limitação bioquímica direta.

Kath et al. (2022), analisando produtividade de C. arabica em importantes regiões produtoras do mundo, identificaram rápida queda de produtividade quando o DPV médio durante o desenvolvimento dos frutos ultrapassava aproximadamente 0,82 kPa.

Mais uma vez, esse valor não é um setpoint fisiológico para uma estação meteorológica de uma propriedade.

Ele resulta de uma análise climática global e em escala sazonal.

Seu valor está em mostrar que DPV explicou a produtividade melhor que olhar apenas para temperatura.

Tomate: o estádio muda completamente a interpretação

Yu et al. (2024) trabalharam com tomate em ambiente protegido e compararam DPV de 0,95 e 2,22 kPa em diferentes fases da cultura.

O resultado foi especialmente interessante porque não apareceu uma regra simples do tipo “baixo DPV é sempre melhor”.

Reduzir o DPV durante a expansão dos frutos favoreceu massa, dimensões, produtividade e acúmulo de Ca.

Durante a maturação, por outro lado, DPV mais elevado aumentou sólidos solúveis e açúcares nos frutos.

O tratamento considerado mais equilibrado pelos autores combinou DPV de 2,22 kPa nas fases de muda, florescimento e maturação, com 0,95 kPa durante a expansão dos frutos.

A lição é mais importante que os números:

O DPV que favorece determinada característica em uma fase pode ser inadequado em outra.

E o aumento de açúcar no fruto durante maturação não deve ser confundido automaticamente com maior assimilação de carbono, porque concentração e balanço hídrico do fruto também mudam.

Não existe um DPV “ideal” universal para o campo

É tentador transformar todos esses dados em uma tabela:

  • 0,8 kPa = bom;
  • 1,5 kPa = atenção;
  • 3 kPa = ruim.

Isso seria atraente, mas fisiologicamente frágil.

Um DPV de 2 kPa pode produzir consequências muito diferentes em:

  • soja de sequeiro;
  • milho irrigado;
  • cafeeiro sombreado;
  • videira;
  • algodão adaptado a altas demandas evaporativas;
  • tomate em estufa.

A resposta depende também de:

  • radiação;
  • velocidade do vento;
  • água no solo;
  • temperatura foliar;
  • profundidade radicular;
  • genótipo;
  • fenologia.

Por isso, os limiares encontrados nos estudos devem ser tratados como dados de contexto, não como valores universais de manejo.

Implicações práticas: o que isso muda no manejo do DPV e do carbono?

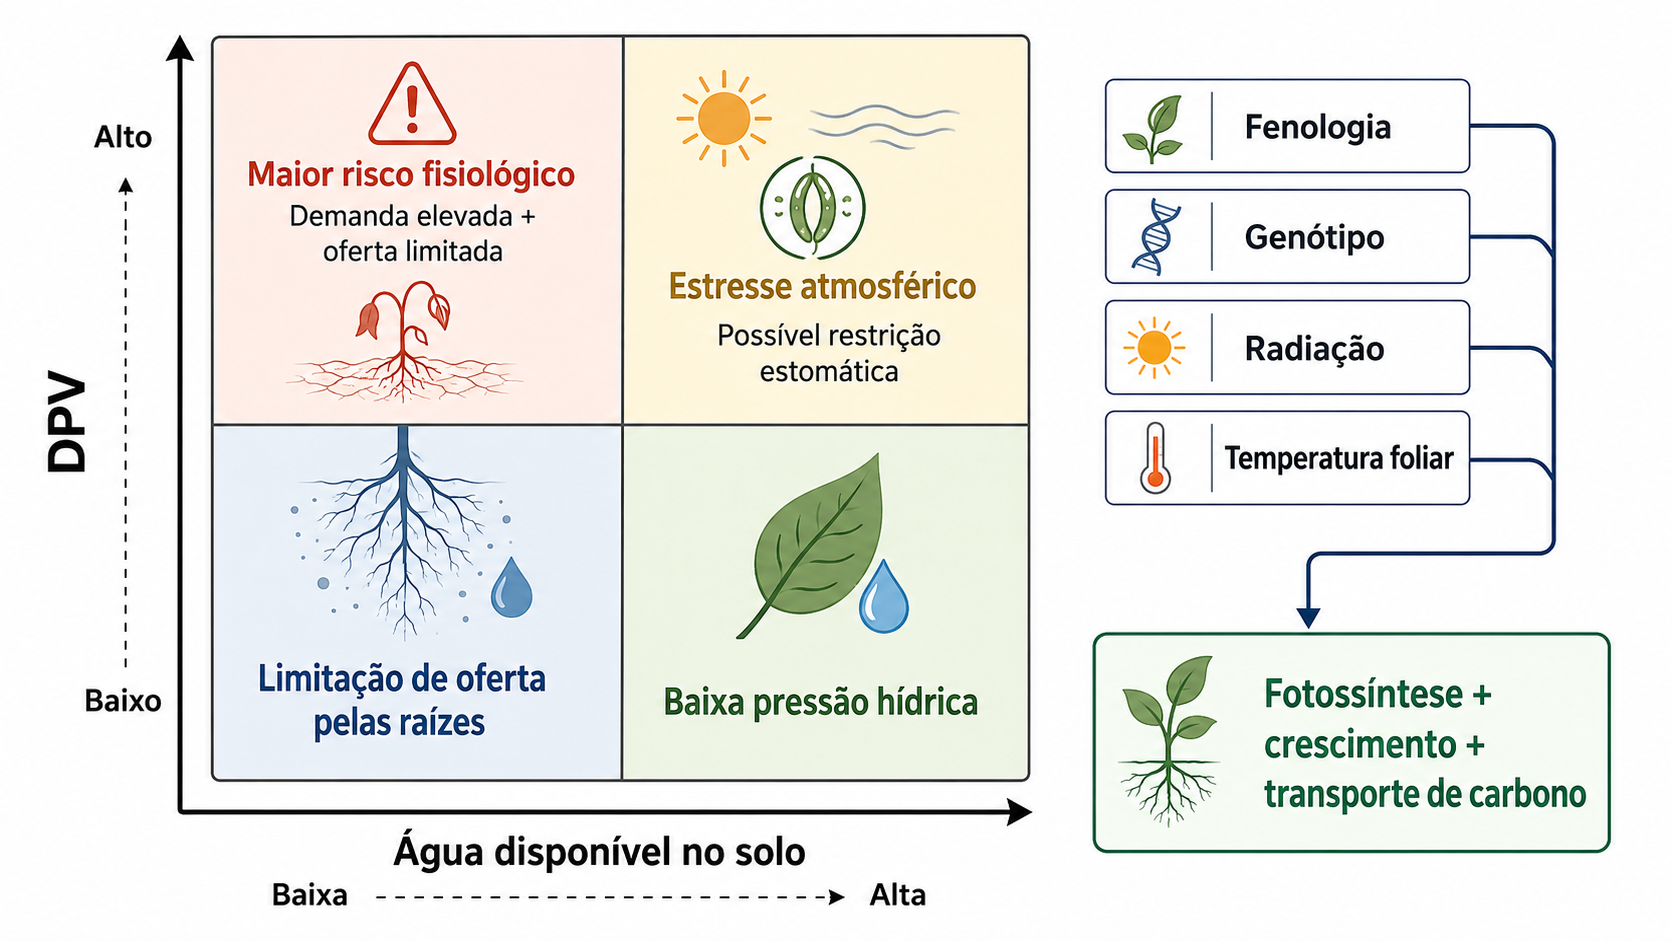
A principal mudança é parar de interpretar água no solo e demanda atmosférica como se fossem a mesma coisa.

A planta está posicionada entre dois extremos:

oferta de água pelo solo

e

demanda de água pela atmosfera.

O risco aumenta quando a demanda cresce mais rapidamente do que a planta consegue abastecer as folhas.

Monitore o pico, não apenas a média diária

Uma média de DPV pode esconder quatro ou cinco horas extremamente críticas no início da tarde.

É justamente nesse período que podem ocorrer:

  • fechamento estomático;
  • queda de fotossíntese;
  • aquecimento foliar;
  • redução do crescimento;
  • maior consumo de água.

Para interpretar fisiologia, uma série horária é muito mais útil que apenas um valor médio diário.

Combine DPV com água no solo

Um DPV alto com solo bem abastecido é uma condição.

O mesmo DPV com solo secando é outra.

Koehler et al. (2023) mostram que seca atmosférica e seca do solo podem produzir respostas de transpiração semelhantes por caminhos hidráulicos diferentes, e a interação entre as duas determina o estado final da planta.

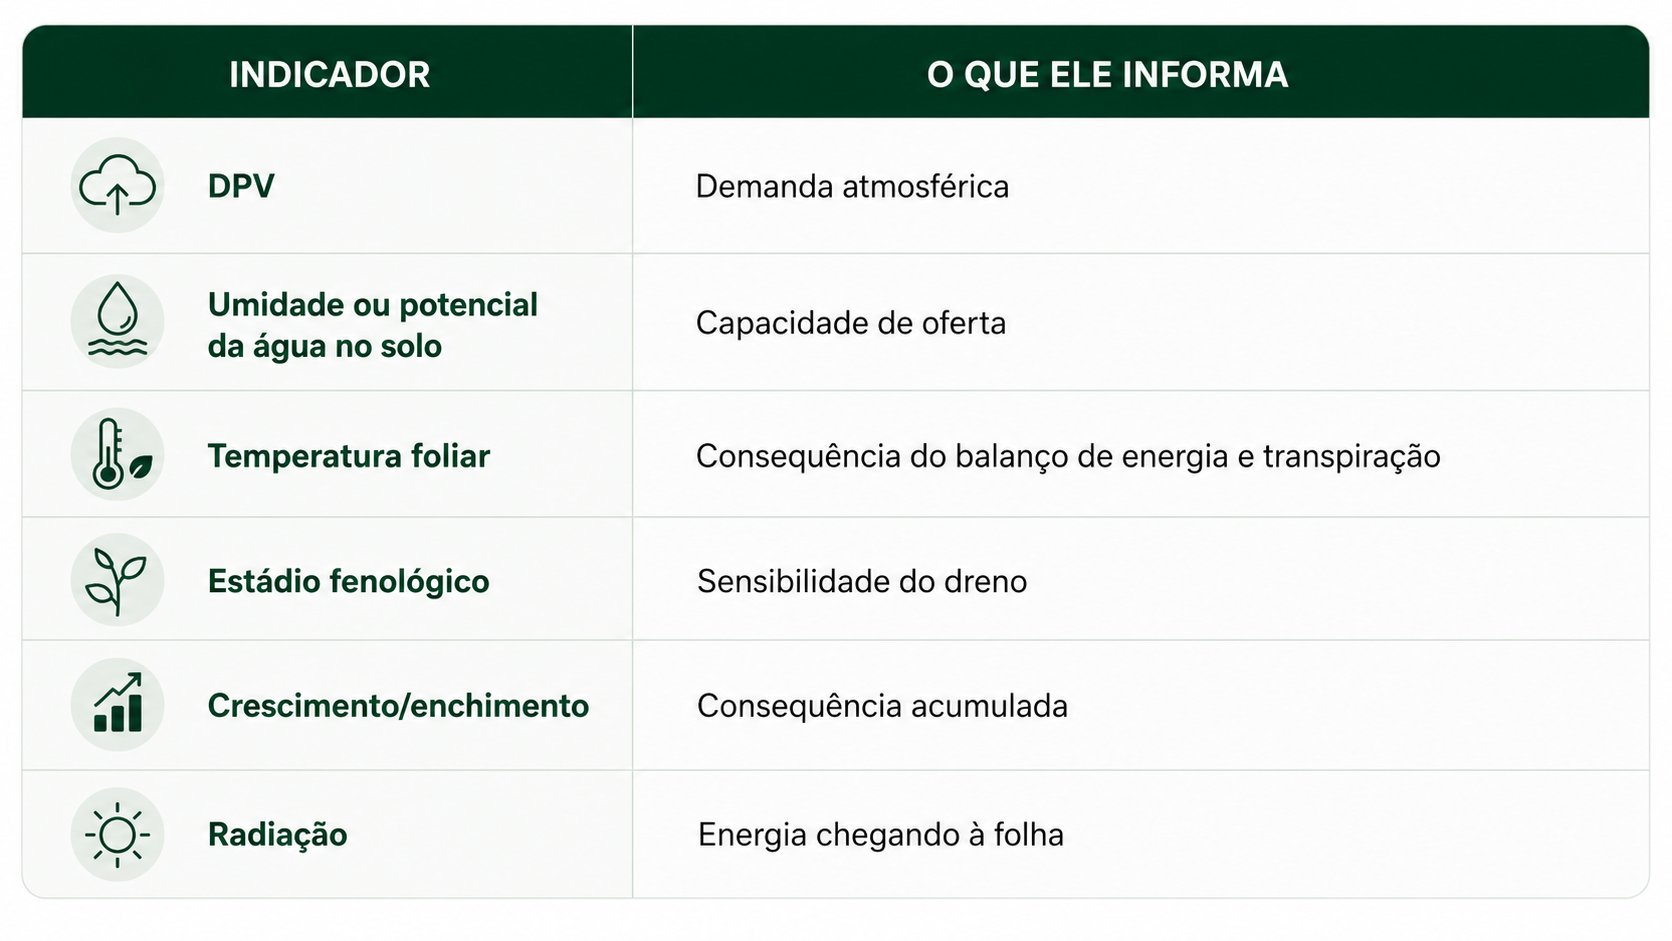
Na lavoura, portanto, faz sentido acompanhar conjuntamente:

Em culturas irrigadas, não espere o solo secar para reconhecer alto risco

Uma cultura pode perder várias horas de assimilação em dias de DPV elevado antes que a umidade do solo pareça problemática.

Em sistemas irrigados, o objetivo passa a ser preservar capacidade hidráulica suficiente para que a planta consiga responder à demanda atmosférica.

Isso não significa irrigar automaticamente toda vez que o DPV sobe.

Significa considerar o DPV dentro do balanço:

demanda atmosférica + capacidade do solo + capacidade hidráulica da planta.

Em sequeiro, limitar transpiração pode ser vantajoso

Soja e algodão mostram que alguns genótipos restringem a transpiração quando o DPV ultrapassa determinado ponto.

Isso reduz assimilação naquele momento, mas pode economizar água para períodos posteriores.

A vantagem depende do ambiente.

Uma estratégia conservadora tende a ter maior valor quando existe risco real de faltar água posteriormente.

Em ambientes com suprimento hídrico confiável, a mesma resposta pode limitar carbono desnecessariamente.


Isso não significa que deva substituir o manejo radicular.


Um estudo de campo de três safras em milho-doce cultivado em alta densidade encontrou aumento de SPAD, acúmulo de nutrientes, enchimento de grãos e produtividade com aplicações foliares de MgSO₄·7H₂O. O tratamento mais eficiente naquele experimento utilizou três aplicações de solução a 4%, mas esse resultado pertence àquelas condições experimentais e não constitui uma concentração universal para outras culturas ou ambientes.


A via foliar faz mais sentido quando existe:


  • necessidade de resposta relativamente rápida;
  • limitação temporária da absorção radicular;
  • deficiência identificada;
  • demanda elevada em período específico;
  • complementação de um programa radicular adequado.

Proteja as fases de forte demanda por carbono

Os dados de milho reforçam a importância do enchimento de grãos.

Em café, o desenvolvimento dos frutos também aparece altamente sensível ao DPV.

Em frutíferas, frutos em expansão exigem água e carbono simultaneamente.

Portanto, um pico de DPV não possui o mesmo peso fisiológico em qualquer estádio.

Quando a cultura entra em:

  • floração;
  • pegamento;
  • expansão de fruto;
  • formação e enchimento de grãos;

o custo de perder horas de fotossíntese e transporte pode ser muito maior.

Temperatura da folha pode ser um indicador prático

Termômetros infravermelhos e câmeras térmicas acrescentam uma informação que temperatura do ar não oferece.

Folhas que mantêm transpiração eficiente tendem a conseguir dissipar parte do calor.

Se o dossel aquece progressivamente durante o aumento do DPV, pode ser um sinal de restrição estomática ou hidráulica.

Isso não deve ser interpretado isoladamente, mas combinado com:

  • DPV;
  • umidade do solo;
  • radiação;
  • estado da cultura.
Figura 4. O risco fisiológico não é determinado pelo DPV isoladamente. Ele emerge da interação entre demanda atmosférica, água no solo, temperatura foliar, genótipo e estádio. O efeito final sobre os carboidratos depende de fotossíntese, armazenamento, transporte e força dos drenos.

Como estudar DPV e carboidratos sem chegar a conclusões erradas?

Para entender de fato o efeito do DPV, algumas medições precisam ser separadas.

Não medir apenas concentração de açúcares

Uma concentração maior pode resultar de:

  • maior síntese;
  • menor crescimento;
  • menor exportação;
  • perda de água;
  • conversão de amido;
  • alteração na força do dreno.

Sempre que possível, separar:

  • glicose;
  • frutose;
  • sacarose;
  • amido;
  • outros carboidratos de reserva.

Acompanhar fonte e dreno

Em culturas reprodutivas, analisar apenas a folha não fecha o balanço.

É importante observar também:

  • raízes;
  • frutos;
  • grãos;
  • órgãos de reserva.

Traçadores com ^13CO₂ são especialmente úteis porque permitem acompanhar para onde o carbono recentemente assimilado está sendo enviado.

Separar DPV de temperatura

Comparar um tratamento de 25 °C e 60% UR com outro de 35 °C e 30% UR modifica simultaneamente:

  • DPV;
  • temperatura;
  • metabolismo;
  • respiração.

Isso impede saber qual fator provocou a resposta.

Experimentos fisiológicos robustos precisam, sempre que possível, manipular DPV de maneira independente da temperatura.

Medir a dinâmica diurna

O estudo de Lolium perenne deixa isso evidente.

Uma medição realizada apenas às 14h poderia sugerir forte limitação de crescimento.

Avaliar o ciclo completo revelou compensação noturna.

Carboidratos também variam entre:

  • manhã;
  • pico de DPV;
  • final da tarde;
  • noite.

O balanço de 24 horas pode contar uma história diferente de uma fotografia do meio-dia.

Conclusão

O déficit de pressão de vapor costuma ser apresentado como uma variável de transpiração.

Ele é muito mais que isso.

Quando o DPV aumenta, a atmosfera passa a exigir mais água da planta.

A resposta começa no sistema hidráulico, chega aos estômatos e rapidamente alcança a economia de carbono.

Fechar os estômatos reduz perda de água, mas também restringe CO₂.

Menos CO₂ significa menor produção de carboidratos novos.

Ainda assim, a quantidade de açúcar presente em um tecido não necessariamente diminui.

Crescimento pode desacelerar.

Exportação pode mudar.

Reservas podem ser utilizadas.

Açúcares podem participar do ajuste osmótico.

O transporte pelo floema pode precisar operar sob condições hidráulicas mais difíceis.

E os drenos podem modificar sua capacidade de consumir carbono.

Por isso, duas plantas com a mesma fotossíntese instantânea podem terminar o dia com partições de carbono diferentes.

E duas plantas submetidas ao mesmo DPV podem tomar decisões diferentes dependendo da genética e da quantidade de água disponível no solo.

Algodão e soja mostram estratégias contrastantes de limitação da transpiração.

Trigo mostra que a atmosfera seca pode alterar metabolismo de carbono mesmo antes de faltar água no substrato.

Milho mostra que a sensibilidade ao DPV se conecta diretamente ao enchimento de grãos e à produtividade.

Café mostra por que atribuir todo declínio da fotossíntese à temperatura pode levar ao diagnóstico errado.

Tomate mostra que o efeito depende do estádio e que uma condição capaz de favorecer concentração de açúcares não é necessariamente aquela que maximiza expansão do fruto.

O DPV, portanto, não deve ser tratado apenas como mais uma variável meteorológica.

Ele é uma ponte entre:

atmosfera → hidráulica → estômatos → fotossíntese → carboidratos → fonte-dreno → produtividade.

Quando a atmosfera fica mais seca, a planta não decide apenas quanto de água perder. Ela também redefine quando produzir carbono, quanto armazenar e quais drenos ainda conseguirá sustentar.

Em cinco pontos

  1. DPV mede demanda atmosférica, não disponibilidade de água no solo.
  2. DPV elevado pode reduzir assimilação de carbono mesmo em plantas irrigadas.
  3. Menor fotossíntese não significa necessariamente menor concentração foliar de açúcares, porque crescimento, armazenamento e exportação também mudam.
  4. Carboidratos participam simultaneamente de metabolismo, reservas, ajuste osmótico e transporte fonte-dreno.
  5. O impacto agronômico depende do genótipo e do estádio, como mostram dados de soja, algodão, milho, café e tomate.

Perguntas frequentes

DPV alto significa que o solo está seco?

Não. DPV representa demanda atmosférica. Uma planta pode enfrentar alto DPV com solo úmido ou seco. A combinação dos dois é que determina grande parte do risco hidráulico.

DPV alto sempre fecha os estômatos?

A tendência geral é de redução da condutância à medida que o DPV aumenta, mas intensidade e limiar variam muito entre espécies e genótipos.

Alto DPV reduz açúcar na planta?

Pode reduzir a produção diária de carbono ao diminuir a fotossíntese. Entretanto, determinados açúcares podem se acumular localmente se o crescimento ou a exportação diminuírem ainda mais.

Açúcares ajudam a planta a tolerar alto DPV?

Podem contribuir para o potencial osmótico, reservas e manutenção do metabolismo. Isso não significa que simplesmente acumular mais açúcar torne uma planta tolerante.

Existe um DPV ideal para todas as culturas?

Não. Os limiares variam com cultura, genótipo, estádio e disponibilidade de água. Valores encontrados em estudos devem ser interpretados dentro de seu contexto experimental.

A temperatura foliar ajuda a monitorar DPV?

Sim. Como o gradiente folha-ar depende da temperatura da folha, medições por infravermelho podem melhorar muito a interpretação quando combinadas com temperatura e umidade do ar.

Referências

Baca Cabrera, J. C. et al. 2020. Atmospheric CO₂ and VPD alter the diel oscillation of leaf elongation in perennial ryegrass: compensation of hydraulic limitation by stored-growth. New Phytologist, 227, 1776-1789. DOI: 10.1111/nph.16639.

Braun, D. M. 2022. Phloem Loading and Unloading of Sucrose: What a Long, Strange Trip from Source to Sink. Annual Review of Plant Biology, 73, 553-584. DOI: 10.1146/annurev-arplant-070721-083240.

Concurrent improvements in maize yield and drought resistance through breeding advances in the U.S. Corn Belt. 2025. Nature Communications.

DaMatta, F. M. 2025. Vapor pressure deficit, not temperature per se, limits coffee photosynthesis under irrigation. Agricultural & Environmental Letters, 10, e70050. DOI: 10.1002/ael2.70050.

Devi, M. J.; Reddy, V. R. 2018. Transpiration Response of Cotton to Vapor Pressure Deficit and Its Relationship With Stomatal Traits. Frontiers in Plant Science, 9, 1572. DOI: 10.3389/fpls.2018.01572.

Fakhet, D. et al. 2021. Short-Term Exposure to High Atmospheric Vapor Pressure Deficit Severely Impacts Durum Wheat Carbon and Nitrogen Metabolism in the Absence of Edaphic Water Stress. Plants, 10, 120. DOI: 10.3390/plants10010120.

Grossiord, C. et al. 2020. Plant responses to rising vapor pressure deficit. New Phytologist, 226, 1550-1566. DOI: 10.1111/nph.16485.

Kath, J. et al. 2022. Vapour pressure deficit determines critical thresholds for global coffee production under climate change. Nature Food, 3, 871-880. DOI: 10.1038/s43016-022-00614-8.

Koehler, T. et al. 2023. Transpiration response to soil drying versus increasing vapor pressure deficit in crops: physical and physiological mechanisms and key plant traits. Journal of Experimental Botany, 74, 4789-4805.

Novick, K. A. et al. 2024. The impacts of rising vapour pressure deficit in natural and managed ecosystems. Plant, Cell & Environment. DOI: 10.1111/pce.14846.

Rebucci, B.; Poni, S. 1997. Effects of manipulated grape berry transpiration on post-veraison sugar accumulation. Australian Journal of Grape and Wine Research. DOI: 10.1111/j.1755-0238.1997.tb00116.x.

Stanfield, R. C.; Bartlett, M. K. 2022. Coordination Between Phloem Loading and Structure Maintains Carbon Transport Under Drought. Frontiers in Plant Science, 13, 787837.

Yu, X. et al. 2024. Vapour pressure deficit affects crop water productivity, yield, and quality in tomatoes. Agricultural Water Management, 299, 108879. DOI: 10.1016/j.agwat.2024.108879.
AF
Sobre o autor
André Ferraz

Engenheiro Agrônomo, especialista em Fisiologia Vegetal e Nutrição de Plantas. Escreve no Planta em Resposta traduzindo ciência em raciocínio aplicável ao campo.